
Determinació de múltiples components d'índex i avaluació de la qualitat de les píndoles Jinkui Shenqi per HPLC: combinat amb ingredients actius de Cistanche Tubulosa i perspectives d'aplicació
Jun 15, 2026
1. Introducció
La identificació d'ingredients alimentaris amb propietats immunomoduladores juntament amb els seus respectius objectius moleculars ha despertat un interès creixent en els últims anys. A causa de la seva gran diversitat de lligands, la superfamília potencial del receptor transitori dels canals iònics (canals TRP) representa una classe molt interessant d'estructures diana potencials.
La superfamília de canals TRP de mamífers inclou sis famílies de proteïnes relacionades, és a dir, l'anquirina (TRPA), la canònica (TRPC), la melastatina (TRPM), la mucolipina (TRPML), la policistina (TRPP) i la família vanilloide (TRPV), totes les quals normalment comparteixen sis segments transmembrana que s'agrupen com a tetràmers per formar un catió de porció selectiva variable. El canal TRPV1 pot ser, amb diferència, el membre més investigat de la superfamília TRP. TRPV1 es va identificar inicialment com el receptor de la capsaicina, el component picant dels xiles.[2] Més tard, també es va demostrar que els ingredients picants del gingebre, els gingerols, activaven TRPV1.[3]

El paper biològic de TRPV1 en tipus de cèl·lules no neuronals encara està sota una àmplia investigació, però els resultats disponibles impliquen funcions molt més enllà de la percepció sensorial i tèrmica. Per exemple, una intervenció de 12 setmanes amb una dosi diària de 0,15 mg de l'agonista TRPV1 nonivamida, un anàleg estructural de la capsaicina, va evitar un augment de la massa greix corporal induïda per la dieta i l'augment dels nivells de serotonina plasmàtica en subjectes sans amb sobrepès.[4]
En els adipòcits 3T3-L1, l'activació de TRPV1 per la nonivamida va disminuir l'acumulació de lípids durant la diferenciació i la maduració en suprimir l'expressió de PPAR𝛾.[5] En els macròfags, la capsaicina i la nonivamida van atenuar l'alliberament induït per LPS de citocines proinflamatòries com IL6, CXCL8 i TNF-alfa, de manera dependent de TRPV1.[6] No obstant això, les funcions particulars de TRPV1 en leucòcits de sang humana segueixen sent vagues. A les cèl·lules NK humanes, la capsaicina de 10 i 50 μM va induir un augment de les concentracions intracel·lulars de Ca2+, cosa que indica un canal TRPV1 funcional.[7]
Tanmateix, les funcions efectores de cèl·lules NK humitejades, com ara la desgranulació citotòxica i la secreció de citocines, induïdes pel tractament previ de les cèl·lules amb capsaicina durant 1 h en un rang de concentració de 10 a 100 μM, eren en gran part independents de TRPV1.[7] A les cèl·lules T, es va documentar que TRPV1 està implicat en els processos de senyalització del receptor de cèl·lules T, proliferació i diferenciació de cèl·lules T, així com en la producció de citocines.[8] El treball anterior del nostre grup també va demostrar l'expressió funcional de TRPV1 en cèl·lules T primàries humanes.[9] A més, les anàlisis de dosi resposta en concentracions que van des de 0,03 a 300 μmol L-1 van revelar que [6]-gingerol inhibeix la secreció de citocines per part dels leucòcits humans primaris amb un valor IC50 de 82,2 μmol L-1.
Tanmateix, la quantificació de [6]-gingerol en mostres de plasma de subjectes sans va revelar una concentració plasmàtica màxima mitjana de només 42,0 ± 16,3 nmol L−1 després de la ingesta d'1 L de te de gingebre. Com que aquestes concentracions de [6]-gingerol no van tenir cap impacte significatiu en la secreció de citocines en estudis anteriors, [9] no està clar si una concentració rellevant de la dieta de 50 nmol L−1, que s'assoleix al plasma sanguini després del consum d'1 L de te de gingebre, és suficient per modular les respostes immunes cel·lulars en altres leucòcits primaris humans.

Per als neutròfils humans, el coneixement sobre el paper funcional de TRPV1 és limitat. Mentre que Köse i Nazıroglu˘ [10] van mostrar que els fluxos de Ca2+-en neutròfils en resposta a 10 μM de capsaicina es reduïen per l'antagonista de TRPV1 capsazepina, altres resultats no van demostrar que la capsaicina induïa una afluència de Ca{2+ quan es va provar en un rang de concentració d'1-10 μM, malgrat TRPV detectable amb TRPV10. expressió.[11]
Els neutròfils són els leucòcits més abundants a la sang humana i representen entre el 60 i el 70% de tots els glòbuls blancs circulants. Són les primeres cèl·lules immunitàries que es recluten als llocs d'infecció; per tant, sovint se'ls coneix com la primera línia de defensa.[12] El reclutament de neutròfils es desencadena, entre d'altres, pel pèptid bacterià o derivat de mitocondris N-formilmetionina-leucil-fenilalanina (fMLF) o quimiocines com CXCL8 (IL-8).[13]
Els mecanismes de defensa dels neutròfils inclouen la fagocitosi,[14] l'alliberament d'enzims antimicrobians mitjançant la desgranulació[15], la generació d'espècies reactives d'oxigen (ROS)[16] i la formació de trampes extracel·lulars de neutròfils.[17] A més d'aquests mecanismes de defensa directa, els neutròfils contribueixen encara més a les respostes immunitàries posteriors mitjançant l'alliberament de diverses citocines i quimiocines.[18] A més, els neutròfils poden experimentar un procés d'amor que els permet respondre amb més força a l'activació completa posterior.[16b]
En els darrers anys, s'ha augmentat l'evidència que els ingredients d'aliments i/o plantes medicinals poden modificar una o més de les respostes de defensa esmentades dels neutròfils humans. Aquestes modificacions inclouen l'augment de l'activitat fagocitòtica[19] i la generació de ROS,[20] la quimiotaxi augmentada cap a fMLF,[21] i la formació de trampes extracel·lulars de neutròfils.[20] Tanmateix, no es van identificar els compostos actius. Els constituents de Ferula akitschkensis (𝛽-pinene, sabinene, 𝛾-terpinè, geranylacetona i isobornilacetat) van desensibilitzar els neutròfils a l'afluència de Ca2+ induïda per fMLF i CXCL8 i van inhibir la quimiotaxi induïda per fMLF, on l'efecte de la geranytona induïda per la TRPV21 va ser induïda per la media.
A partir de les dades disponibles, vam plantejar la hipòtesi que l'activació induïda per lligands de TRPV1 per [6]-gingerol pot afectar les funcions generals dels neutròfils, ja sigui directament o mitjançant la millora de les seves respostes als estímuls activadors. En l'àmbit d'aquesta hipòtesi, ens vam dirigir especialment a dilucidar si una concentració nutricionalment rellevant verificada és suficient per modular les respostes immunes cel·lulars en neutròfils primaris humans com a part de la població de leucòcits. '
A més, es va intentar comparar els nivells d'expressió d'ARN de tots els membres de la superfamília TRP de mamífers en cinc dels tipus cel·lulars més destacats de la sang humana per obtenir una visió global qualitativa i quantitativa de l'expressió del canal de TRP en leucòcits humans.
2. Resultats
2.1. Abundància i nivells relatius de transcripció dels canals TRP en leucòcits humans
Per avaluar l'expressió d'ARN del canal TRP als leucòcits sanguinis, es van aïllar cinc dels tipus de cèl·lules de leucòcits més destacats de la sang de donants sans i es va analitzar l'expressió d'ARN dels canals de TRP mitjançant RT-PCR quantitativa (figura 1).
Es van detectar transcripcions específiques del TRPV i de la família TRPM amb freqüències elevades del 75 al 100% en tots els tipus de cèl·lules analitzades. La freqüència global mitjana considerant tots els tipus de cèl·lules va ser del 96% per a la família TRPV i del 98% per a la família TRPM. Les transcripcions específiques de TRPC eren molt menys abundants, que van des del 0% en monòcits, cèl·lules NK, cèl·lules T i cèl·lules B fins al 100% en cèl·lules NK i cèl·lules T amb una freqüència mitjana global de només el 53% (figura 1A). La transcripció específica de TRPC5 només es va detectar en neutròfils, amb una freqüència del 70%.
A més, la transcripció específica de TRPA1 va revelar generalment una abundància força baixa en els tipus de cèl·lules analitzades amb una freqüència del 100% en neutròfils, 25% en monòcits, 80% en cèl·lules NK, 100% en cèl·lules T i 60% en cèl·lules B. Així mateix, la transcripció específica de TRPML3 va mostrar una freqüència baixa en neutròfils (50%), monòcits (25%), cèl·lules NK (40%) i cèl·lules B (20%), però una freqüència del 100% en cèl·lules T. La transcripció específica de TRPV1 es va detectar en tots els tipus de cèl·lules, mostrant una freqüència del 100% en monòcits, cèl·lules NK i cèl·lules T, i una freqüència del 90% en neutròfils i 80% en cèl·lules B.
Pel que fa a l'expressió d'ARN relativa, en comparació amb les freqüències respectives, els canals TRP van revelar un patró d'expressió més específic del tipus de cèl·lula, com és evident comparant els valors Δct respectius en els diferents tipus de cèl·lules analitzats (figura 1B). Per exemple, TRPP3 es va detectar amb una freqüència del 100% en tots els tipus de cèl·lules, però va revelar clarament el nivell d'expressió més alt en monòcits.
En canvi, el canal TRPV2 es va detectar en tots els tipus de cèl·lules investigats, amb un nivell d'expressió d'ARN comparablement alt i una alta freqüència. De la mateixa manera, els nivells de transcripció de TRPV1 eren similars en tots els tipus de cèl·lules examinats (figura 1B).

2.2. TRPV1 Expressió superficial sobre neutròfils
El coneixement actual sobre la funció de TRPV1 en neutròfils humans encara no està clar. Per explorar més a fons els papers de TRPV1 en els neutròfils humans, a continuació vam investigar si el canal TRPV1 s'expressa a la superfície dels neutròfils humans primaris mitjançant citometria de flux de cèl·lules vives (figura 2).
Els neutròfils aïllats es van tacar per a CD15 com a marcador de superfície per als neutròfils (figura 2A, B) i simultàniament es van tacar amb un anticòs elevat contra un epítop al primer bucle extracel·lular de la proteïna TRPV1 (figura 2B) o el control isotip respectiu, aquest últim servint de substitut per mesurar la unió inespecífica (figura 2A). Dins de la població CD15+, es va analitzar la intensitat de fluorescència de FITC. La tinció dels neutròfils amb l'anticòs TRPV1 va conduir a un senyal de fluorescència clarament distingible en comparació amb el control de l'isotip, confirmant així l'expressió superficial de TRPV1 en neutròfils humans primaris (figura 2C). L'anàlisi de neutròfils de quatre donants individuals va revelar una expressió superficial comparable de TRPV1 (figura 2D).


2.3. [6] Augment del Ca intracel·lular induït pel gingerol2+
Com que l'activació de TRPV1 induïda per lligands donarà lloc a una entrada de Ca2+, [23] les concentracions intracel·lulars de Ca2+ de neutròfils es van determinar mitjançant el colorant sensible al Ca{2+-Fura-2. A partir de les nostres troballes anteriors, [9] es va triar una concentració de 50 nM del conegut lligand TRPV1 [6]-gingerol i un temps d'incubació de 2 h. Les anàlisis van demostrar que la incubació de neutròfils amb 50 nM de [6]-gingerol va donar lloc a un augment de les concentracions intracel·lulars de Ca2+ que eren de mitjana un 18,4% ± 1,0% del valor màxim, determinat aplicant 1 μM de la ionomicina ionòfora. L'augment induït per DMSO va ser del 4, 7% ± 1, 2% (figura 3).
2.4. Impacte de [6]-Gingerol en l'expressió TRPV1
A continuació, vam tenir com a objectiu analitzar l'impacte de l'estimulació de TRPV1 per [6]-gingerol en l'expressió de TRPV1 a nivell de transcripció mitjançant q-RTPCR, així com a nivell de proteïna superficial mitjançant la tinció de cèl·lules vives. Amb aquest propòsit, els neutròfils humans es van incubar amb 50 nM [6]-gingerol durant 2 hores i es van quantificar els nivells d'expressió respectius.
Aquesta incubació de 2 h no va afectar ni la transcripció de TRPV1 ni els nivells de proteïnes (figura 4) i tampoc va canviar, excepte per IL6, IL17A, IL24, C5 i GDF5, l'expressió d'ARN dels gens de citocines i quimiocines comuns investigats (figura S1, taula S2, informació de suport).
2.5. Impacte de [6]-Gingerol en l'expressió de marcadors superficials de neutròfils
1. Introducció
La identificació d'ingredients alimentaris amb propietats immunomoduladores juntament amb els seus respectius objectius moleculars ha despertat un interès creixent en els últims anys. A causa de la seva gran diversitat de lligands, la superfamília potencial del receptor transitori dels canals iònics (canals TRP) representa una classe molt interessant d'estructures diana potencials.
La superfamília de canals TRP de mamífers inclou sis famílies de proteïnes relacionades, és a dir, l'anquirina (TRPA), la canònica (TRPC), la melastatina (TRPM), la mucolipina (TRPML), la policistina (TRPP) i la família vanilloide (TRPV), totes les quals normalment comparteixen sis segments transmembrana que s'agrupen com a tetràmers per formar un catió de porció selectiva variable. El canal TRPV1 pot ser, amb diferència, el membre més investigat de la superfamília TRP. TRPV1 es va identificar inicialment com el receptor de la capsaicina, el component picant dels xiles.[2] Més tard, també es va demostrar que els ingredients picants del gingebre, els gingerols, activaven TRPV1.[3]
El paper biològic de TRPV1 en tipus de cèl·lules no neuronals encara està sota una àmplia investigació, però els resultats disponibles impliquen funcions molt més enllà de la percepció sensorial i tèrmica. Per exemple, una intervenció de 12 setmanes amb una dosi diària de 0,15 mg de l'agonista TRPV1 nonivamida, un anàleg estructural de la capsaicina, va evitar un augment de la massa greix corporal induïda per la dieta i l'augment dels nivells de serotonina plasmàtica en subjectes sans amb sobrepès.[4]
En els adipòcits 3T3-L1, l'activació de TRPV1 per la nonivamida va disminuir l'acumulació de lípids durant la diferenciació i la maduració en suprimir l'expressió de PPAR𝛾.[5] En els macròfags, la capsaicina i la nonivamida van atenuar l'alliberament induït per LPS de citocines proinflamatòries com IL6, CXCL8 i TNF-alfa, de manera dependent de TRPV1.[6] No obstant això, les funcions particulars de TRPV1 en leucòcits de sang humana segueixen sent vagues. A les cèl·lules NK humanes, la capsaicina de 10 i 50 μM va induir un augment de les concentracions intracel·lulars de Ca2+, cosa que indica un canal TRPV1 funcional.[7]
Tanmateix, les funcions efectores de cèl·lules NK humitejades, com ara la desgranulació citotòxica i la secreció de citocines, induïdes pel tractament previ de les cèl·lules amb capsaicina durant 1 h en un rang de concentració de 10 a 100 μM, eren en gran part independents de TRPV1.[7] A les cèl·lules T, es va documentar que TRPV1 està implicat en els processos de senyalització del receptor de cèl·lules T, proliferació i diferenciació de cèl·lules T, així com en la producció de citocines.[8] El treball anterior del nostre grup també va demostrar l'expressió funcional de TRPV1 en cèl·lules T primàries humanes.[9] A més, les anàlisis de dosi resposta en concentracions que van des de 0,03 a 300 μmol L-1 van revelar que [6]-gingerol inhibeix la secreció de citocines per part dels leucòcits humans primaris amb un valor IC50 de 82,2 μmol L-1.
Tanmateix, la quantificació de [6]-gingerol en mostres de plasma de subjectes sans va revelar una concentració plasmàtica màxima mitjana de només 42,0 ± 16,3 nmol L−1 després de la ingesta d'1 L de te de gingebre. Com que aquestes concentracions de [6]-gingerol no van tenir cap impacte significatiu en la secreció de citocines en estudis anteriors, [9] no està clar si una concentració rellevant de la dieta de 50 nmol L−1, que s'assoleix al plasma sanguini després del consum d'1 L de te de gingebre, és suficient per modular les respostes immunes cel·lulars en altres leucòcits primaris humans.
Per als neutròfils humans, el coneixement sobre el paper funcional de TRPV1 és limitat. Mentre que Köse i Nazıroglu˘ [10] van mostrar que els fluxos de Ca2+-en neutròfils en resposta a 10 μM de capsaicina es reduïen per l'antagonista de TRPV1 capsazepina, altres resultats no van demostrar que la capsaicina induïa una afluència de Ca{2+ quan es va provar en un rang de concentració d'1-10 μM, malgrat TRPV detectable amb TRPV10. expressió.[11]
Els neutròfils són els leucòcits més abundants a la sang humana i representen entre el 60 i el 70% de tots els glòbuls blancs circulants. Són les primeres cèl·lules immunitàries que es recluten als llocs d'infecció; per tant, sovint se'ls coneix com la primera línia de defensa.[12] El reclutament de neutròfils es desencadena, entre d'altres, pel pèptid bacterià o derivat de mitocondris N-formilmetionina-leucil-fenilalanina (fMLF) o quimiocines com CXCL8 (IL-8).[13]
Els mecanismes de defensa dels neutròfils inclouen la fagocitosi,[14] l'alliberament d'enzims antimicrobians mitjançant la desgranulació[15], la generació d'espècies reactives d'oxigen (ROS)[16] i la formació de trampes extracel·lulars de neutròfils.[17] A més d'aquests mecanismes de defensa directa, els neutròfils contribueixen encara més a les respostes immunitàries posteriors mitjançant l'alliberament de diverses citocines i quimiocines.[18] A més, els neutròfils poden experimentar un procés d'amor que els permet respondre amb més força a l'activació completa posterior.[16b]
En els darrers anys, s'ha augmentat l'evidència que els ingredients d'aliments i/o plantes medicinals poden modificar una o més de les respostes de defensa esmentades dels neutròfils humans. Aquestes modificacions inclouen l'augment de l'activitat fagocitòtica[19] i la generació de ROS,[20] la quimiotaxi augmentada cap a fMLF,[21] i la formació de trampes extracel·lulars de neutròfils.[20] Tanmateix, no es van identificar els compostos actius. Els constituents de Ferula akitschkensis (𝛽-pinene, sabinene, 𝛾-terpinè, geranylacetona i isobornilacetat) van desensibilitzar els neutròfils a l'afluència de Ca2+ induïda per fMLF i CXCL8 i van inhibir la quimiotaxi induïda per fMLF, on l'efecte de la geranytona induïda per la TRPV21 va ser induïda per la media.
A partir de les dades disponibles, vam plantejar la hipòtesi que l'activació induïda per lligands de TRPV1 per [6]-gingerol pot afectar les funcions generals dels neutròfils, ja sigui directament o mitjançant la millora de les seves respostes als estímuls activadors. En l'àmbit d'aquesta hipòtesi, ens vam dirigir especialment a dilucidar si una concentració nutricionalment rellevant verificada és suficient per modular les respostes immunes cel·lulars en neutròfils primaris humans com a part de la població de leucòcits. '
A més, es va intentar comparar els nivells d'expressió d'ARN de tots els membres de la superfamília TRP de mamífers en cinc dels tipus cel·lulars més destacats de la sang humana per obtenir una visió global qualitativa i quantitativa de l'expressió del canal de TRP en leucòcits humans.
2. Resultats
2.1. Abundància i nivells relatius de transcripció dels canals TRP en leucòcits humans
Per avaluar l'expressió d'ARN del canal TRP als leucòcits sanguinis, es van aïllar cinc dels tipus de cèl·lules de leucòcits més destacats de la sang de donants sans i es va analitzar l'expressió d'ARN dels canals de TRP mitjançant RT-PCR quantitativa (figura 1).
Es van detectar transcripcions específiques del TRPV i de la família TRPM amb freqüències elevades del 75 al 100% en tots els tipus de cèl·lules analitzades. La freqüència global mitjana considerant tots els tipus de cèl·lules va ser del 96% per a la família TRPV i del 98% per a la família TRPM. Les transcripcions específiques de TRPC eren molt menys abundants, que van des del 0% en monòcits, cèl·lules NK, cèl·lules T i cèl·lules B fins al 100% en cèl·lules NK i cèl·lules T amb una freqüència mitjana global de només el 53% (figura 1A). La transcripció específica de TRPC5 només es va detectar en neutròfils, amb una freqüència del 70%.
A més, la transcripció específica de TRPA1 va revelar generalment una abundància força baixa en els tipus de cèl·lules analitzades amb una freqüència del 100% en neutròfils, 25% en monòcits, 80% en cèl·lules NK, 100% en cèl·lules T i 60% en cèl·lules B. Així mateix, la transcripció específica de TRPML3 va mostrar una freqüència baixa en neutròfils (50%), monòcits (25%), cèl·lules NK (40%) i cèl·lules B (20%), però una freqüència del 100% en cèl·lules T. La transcripció específica de TRPV1 es va detectar en tots els tipus de cèl·lules, mostrant una freqüència del 100% en monòcits, cèl·lules NK i cèl·lules T, i una freqüència del 90% en neutròfils i 80% en cèl·lules B.
Pel que fa a l'expressió d'ARN relativa, en comparació amb les freqüències respectives, els canals TRP van revelar un patró d'expressió més específic del tipus de cèl·lula, com és evident comparant els valors Δct respectius en els diferents tipus de cèl·lules analitzats (figura 1B). Per exemple, TRPP3 es va detectar amb una freqüència del 100% en tots els tipus de cèl·lules, però va revelar clarament el nivell d'expressió més alt en monòcits.
En canvi, el canal TRPV2 es va detectar en tots els tipus de cèl·lules investigats, amb un nivell d'expressió d'ARN comparablement alt i una alta freqüència. De la mateixa manera, els nivells de transcripció de TRPV1 eren similars en tots els tipus de cèl·lules examinats (figura 1B).
2.2. TRPV1 Expressió superficial sobre neutròfils
El coneixement actual sobre la funció de TRPV1 en neutròfils humans encara no està clar. Per explorar més a fons els papers de TRPV1 en els neutròfils humans, a continuació vam investigar si el canal TRPV1 s'expressa a la superfície dels neutròfils humans primaris mitjançant citometria de flux de cèl·lules vives (figura 2).
Els neutròfils aïllats es van tacar per a CD15 com a marcador de superfície per als neutròfils (figura 2A, B) i simultàniament es van tacar amb un anticòs elevat contra un epítop al primer bucle extracel·lular de la proteïna TRPV1 (figura 2B) o el control isotip respectiu, aquest últim servint de substitut per mesurar la unió inespecífica (figura 2A). Dins de la població CD15+, es va analitzar la intensitat de fluorescència de FITC. La tinció dels neutròfils amb l'anticòs TRPV1 va conduir a un senyal de fluorescència clarament distingible en comparació amb el control de l'isotip, confirmant així l'expressió superficial de TRPV1 en neutròfils humans primaris (figura 2C). L'anàlisi de neutròfils de quatre donants individuals va revelar una expressió superficial comparable de TRPV1 (figura 2D).
2.3. [6] Augment del Ca intracel·lular induït pel gingerol2+
Com que l'activació de TRPV1 induïda per lligands donarà lloc a una entrada de Ca2+, [23] les concentracions intracel·lulars de Ca2+ de neutròfils es van determinar mitjançant el colorant sensible al Ca{2+-Fura-2. A partir de les nostres troballes anteriors, [9] es va triar una concentració de 50 nM del conegut lligand TRPV1 [6]-gingerol i un temps d'incubació de 2 h. Les anàlisis van demostrar que la incubació de neutròfils amb 50 nM de [6]-gingerol va donar lloc a un augment de les concentracions intracel·lulars de Ca2+ que eren de mitjana un 18,4% ± 1,0% del valor màxim, determinat aplicant 1 μM de la ionomicina ionòfora. L'augment induït per DMSO va ser del 4, 7% ± 1, 2% (figura 3).
2.4. Impacte de [6]-Gingerol en l'expressió TRPV1
A continuació, vam tenir com a objectiu analitzar l'impacte de l'estimulació de TRPV1 per [6]-gingerol en l'expressió de TRPV1 a nivell de transcripció mitjançant q-RTPCR, així com a nivell de proteïna superficial mitjançant la tinció de cèl·lules vives. Amb aquest propòsit, els neutròfils humans es van incubar amb 50 nM [6]-gingerol durant 2 hores i es van quantificar els nivells d'expressió respectius.
Aquesta incubació de 2 h no va afectar ni la transcripció de TRPV1 ni els nivells de proteïnes (figura 4) i tampoc va canviar, excepte per IL6, IL17A, IL24, C5 i GDF5, l'expressió d'ARN dels gens de citocines i quimiocines comuns investigats (figura S1, taula S2, informació de suport).
2.5. Impacte de [6]-Gingerol en l'expressió de marcadors superficials de neutròfils
1 Instruments i materials
1.1 Instruments
1.2 Estàndards de referència i matèries primeres
2 Mètodes i resultats
2.1 Preparació de solucions d'assaig

2.2 Preparació de solucions estàndard de referència mixtes
2.3 Preparació de solucions de control negatiu
2.4 Condicions cromatogràfiques
2.5 Verificació de la relació lineal
2.6 Validació metodològica
2.6.1 Prova de precisió
2.6.2 Prova de repetibilitat
2.6.3 Prova d'estabilitat
2.6.4 Prova de recuperació de pics
2.8 Anàlisi de components principals (PCA)
3 Discussió
3.1 Selecció de components de control de qualitat i anàlisi funcional dels principis actius
- Morroniside: Exhibeix efectes antioxidants, neuroprotectors i de millora de la funció renal.
- Loganin: Capaç de regular la funció immune, exercir activitat antiinflamatòria i protegir els sistemes cardiovascular i cerebrovascular.
- Paeonol: Ofereix potents efectes antiinflamatoris, antibacterians i antioxidants i regula la coagulació de la sang.
- Àcid cinàmic: Millora la immunitat, alleuja la inflamació, combat l'oxidació i millora la circulació sanguínia.
- Acteòsid: Un potent ingredient amb propietats antioxidants, antiinflamatòries i neuroprotectores destacades.
- 7-hidroxicocumarina: Té activitats antibacterianes, antiinflamatòries i immunomoduladores.

3.2 Optimització de les condicions cromatogràfiques

3.3 Avaluació de resultats
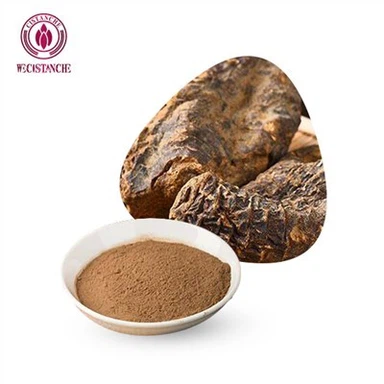
Extracte de Cistanche Tubulosa d'alta activitat: la font principal d'acteòsid d'alta concentració per al desenvolupament global de productes a base d'herbes

Els nostres avantatges de fàbrica i producció
Ingredients actius superiors de l'extracte de Cistanche Tubulosa
Especificacions de l'extracte de Cistanche

Aplicació del producte per als mercats europeus i americans
- Cistanche Càpsules de suplements dietètics: Estandarditzat amb un 75% de glucòsids feniletanoides totals, un 30% d'echinacòsid i un 12% d'acteòsid. Funcions: augmentar la immunitat, millorar la memòria, alleujar la fatiga, anti-envelliment, protegir els ronyons i regular el moviment intestinal.
Cistanche 75% de glucòsids feniletanoides totals, 30% d'echinacòsid i 12% d'acteòsid Càpsules


- Pols d'extracte de Cistanche (qualitat alimentària): Múltiples especificacions per a formulacions personalitzades, àmpliament utilitzades en aliments funcionals, additius de begudes i matèries primeres per a la cura de la pell.
- Pastilles de Cistanche i líquid oral: Dirigit a l'alleujament del restrenyiment, la recuperació de la fatiga i la millora cognitiva.
- Licor d'herbes Cistanche: Fórmula homòloga medicinal i comestible, popular per al manteniment diari de la salut.
Per què triar el nostre extracte de Cistanche Tubulosa?
- Màxim contingut d'acteòsids: Natural Cistanche tubulosa de Xinjiang Hotan té l'acumulació més alta d'acteòsid entre totes les plantes a base d'herbes, amb el nostre extracte d'alta qualitat que arriba16% de contingut en acteòsids, superant amb escreix els materials herbaris convencionals.
- Cadena industrial completa: Des de la plantació de matèries primeres, extracció, purificació fins a la producció de productes acabats, el control de qualitat del procés complet garanteix un contingut estable d'ingredients.
- Certificacions de compliment global: Les certificacions HALAL, KOSHER, USDA Orgàniques i relacionades amb la UE admeten un accés fluid al mercat a Europa, Amèrica i altres regions.
- Serveis personalitzats: Oferim especificacions d'extracte personalitzades, serveis OEM/ODM per a càpsules, tauletes i altres productes acabats per satisfer les diverses necessitats de desenvolupament de productes dels socis globals.