
Diferències en els exsudats d'arrel de Haloxylon Ammodendron a través de les edats del suport i la resposta a la germinació de les llavors de Cistanche Deserticola
Oct 08, 2026
Resum
Per aclarir com exsuda l'arrelHaloxylon ammodendron(saxaul) varien segons les edats i comCistanche deserticolaLa germinació de llavors (Cistanche) respon a aquestes diferències, vam investigar rodals saxuals d'1, 3 i 6 anys a la regió d'Alar, Xinjiang, Xina. Les mostres d'exsudat d'arrel es van recollir i analitzar mitjançant metabolòmica no dirigida basada en LC-MS per caracteritzar les diferències de composició. Paral·lelament,Cistancheles llavors es van tractar amb exsudats d'arrels de diferents grups d'edat, i es van determinar les taxes de germinació de les llavors.
Els resultats van mostrar diferències significatives enCistanchetaxa de germinació entre tractaments. El tractament amb exsudats de rodal de 3 anys va produir la taxa de germinació més alta, significativament superior als tractaments amb exsudats de rodals d'1 any i 6 anys, mentre que no es va detectar cap diferència significativa entre els tractaments d'1 any i 6 anys. L'anàlisi metabolòmica va demostrar que els perfils metabòlics generals dels exsudats d'arrel saxual eren clarament distingibles entre les edats de l'estada, i el major nombre de metabòlits diferencials es va produir entre els stands de 3 anys i 1 any. Els metabòlits diferencials es van enriquir principalment en sucres, molècules relacionades amb la vitamina B6, flavonoides/fenòlics i molècules relacionades amb lípids. Les principals diferències de vies van implicar el metabolisme de l'àcid alfa-linolènic, el metabolisme de la vitamina B6 i les vies relacionades amb els flavonoides. Un seguiment posterior mitjançant la integració de fenotips de germinació va indicar que les característiques diferencials representatives consistents amb una germinació més alta també es concentraven en aquestes categories i vies de metabòlits.
Aquestes troballes indiquen una clara diferenciació química dels exsudats de l'arrel saxual entre les edats dels rodals i suggereixen que els rodals de saxaul de 3 anys poden desenvolupar un fons químic d'exsudat més favorable perCistanchegerminació de llavors. Els resultats proporcionen una base teòrica per desenvolupar i optimitzarCistanchetècniques d'inoculació.
Paraules clau: Haloxylon ammodendron; Cistanche deserticola; exsudats d'arrel; metabolòmica; gradient d'edat de suport

Introducció
La restauració dels ecosistemes desèrtics àrids sovint depèn de l'establiment i l'expansió continuada d'arbusts clau [1–2].Haloxylon ammodendronés una espècie d'arbre típica de fixació de sorra a les regions desèrtiques del nord-oest de la Xina i té un paper destacat en la fixació del trencavents i la sorra, l'estabilització de la superfície i el manteniment de l'estructura de la vegetació [3–4]. Al voltant de la gestió i la millora de la funció ecològica de les plantacions de saxaul, s'ha anat formant gradualment una via integral de "restauració ecològica-gestió forestal-utilització dels recursos" [5–7]. Entre aquests enfocaments, la inoculacióCistanche deserticolasota les plantacions de saxaul es considera un model de desenvolupament representatiu que equilibra els beneficis ecològics i industrials [8–9].
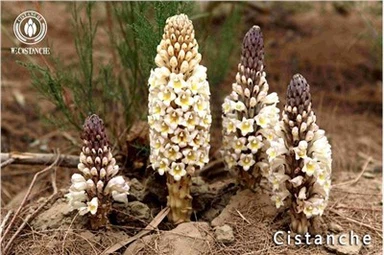
Base de cultiu de Cistanche a Xinjiang, Xina

Cistanche deserticolaté un valor econòmic notable i ha estimulat la demanda de cultiu artificial [10-11]. Tanmateix, en la producció a gran escala, la taxa d'èxit de la inoculació de paràsits fluctua molt, afectant l'estabilitat i l'escalabilitat d'aquest model [12].
En el sistema saxaul-Cistanche, la germinació de llavors i el reconeixement precoç de l'hoste són passos crítics que determinen si es pot establir una relació parasitària [12-13].Cistancheles llavors són extremadament petites i l'inici de la germinació depèn fortament de l'estimulació dels exsudats de l'arrel hoste [14–15]. Després de la germinació, les plàntules han de localitzar les arrels de l'hoste en poc temps i entrar en el procés de formació d'haustori [16]. Per tant, la intensitat i la composició dels senyals de l'hoste es reflecteixen directament en l'eficiència de la germinació i les taxes d'èxit del parasitisme posteriors [16-17]. Per a les plantes paràsites obligades, aquests senyals també poden formar una "combinació de condicions" temps-espai que és més probable que desencadeni la germinació, és a dir, l'anomenada finestra de germinació [18-19].
Els exsudats d'arrel de Saxaul contenen diverses classes de compostos que poden participar en processos de reconeixement i inducció de l'hoste, com ara quinones, àcids orgànics i molècules relacionades amb les hormones. La seva composició està influenciada tant per l'etapa de desenvolupament de la planta com per l'entorn ambiental [20-21]. Estudis anteriors suggereixen que els exsudats d'arrel varien dinàmicament segons les estacions o les etapes de creixement, la qual cosa pot comportar encara més diferències enCistanchetaxa de germinació, eficiència de formació d'haustori i establiment de parasitisme [22]. Des d'una perspectiva de gestió de les plantacions, un gradient d'edat es correspon sovint amb el desenvolupament dels sistemes d'arrels hoste, l'acumulació d'aportacions de carboni i l'estabilització del microambient de la rizosfera. En conseqüència, el fons químic de l'exsudat pot patir ajustos sistemàtics [23-26].
Tanmateix, l'evidència segueix sent insuficient sobre com les diferències d'edat canvien l'espectre químic dels exsudats d'arrel de saxaul i si aquests canvis poden produir respostes de germinació quantificables. Aquesta bretxa també limita l'orientació quantitativa directa per seleccionar l'edat de l'estand amfitrió i programar els períodes clau de gestió.
La metabolòmica pot revelar canvis en els perfils dels metabòlits d'exsudat arrel. Es poden utilitzar mètodes estadístics multivariants com l'anàlisi de components principals (PCA) i l'anàlisi discriminant de mínims quadrats parcials ortogonals (OPLS-DA) per distingir grups i identificar metabòlits diferencials [27–28]. L'anotació de la ruta i l'anàlisi d'enriquiment ajuden a interpretar la direcció dels canvis bioquímics [29-30]. En comparar de manera sincrònica els resultats de la metabolòmica amb fenotips funcionals (per exemple, la taxa de germinació de llavors), les diferències químiques en els exsudats es poden relacionar amb resultats mesurables: "si es promou la germinació i fins a quin punt", proporcionant un suport més directe per a les decisions de gestió i aplicació [31-33].
Per tant, aquest estudi es va centrar en les poblacions de saxaul de diferents edats a la regió d'Alar, a la vora del desert de Taklamakan. Vam recollir exsudats d'arrel de diferents edats de suport per al perfil de metabolòmica no dirigida LC-MS i vam realitzarCistancheassajos de germinació de llavors utilitzant aquests exsudats com a tractaments. Es van investigar els canvis impulsats per l'edat en els perfils dels metabòlits d'arrel-exsudat (separació general, cribratge diferencial de metabòlits i enriquiment de la via) i els vam relacionar amb diferències en la taxa de germinació. L'estudi proporciona referències quantitatives per millorarCistanchel'èxit de la inoculació i ofereix proves de metabolòmica empírica per a les interaccions químiques entre plantes hostes i paràsites a les regions àrides.
1 Materials i mètodes
1.1 Àrea d'estudi
L'àrea d'estudi es troba a la zona de transició desert-oasi de la ciutat d'Alar, a l'extrem nord del desert de Taklamakan, Xinjiang, Xina. La regió té un clima temperat càlid i extremadament àrid, amb una forta activitat de vent i sorra, precipitacions escasses i evaporació intensa. La precipitació mitjana anual és de 40,1–82,5 mm, mentre que l'evaporació mitjana anual és de 1876,6–2558,9 mm. Els recursos de llum i calor són abundants, i les diferències de temperatura diürnes són grans. La vegetació superficial està dominada per arbustos del desert i herbes escasses. El saxaul és la principal espècie constructiva que s'utilitza per als cinturons de fixació de sorra i paravents locals, i la regió també és una important àrea de producció de saxaul inoculat.Cistanche.
1.2 Recollida i processament de mostres
El mostreig es va realitzar l'abril de 2025 (primavera) a la regió d'Alar. Es van recollir exsudats d'arrels i mostres de sòl sincrònics de rodals de saxaul d'1, 3 i 6 anys.CistancheEs van realitzar experiments de germinació de llavors després del mostreig.
Els tractaments d'edat d'1, 3 i 6 anys es van designar com a AO, AT i AS, respectivament. Cada tractament va incloure tres rèpliques biològiques, etiquetades amb AO1–AO3, AT1–AT3 i AS1–AS3. Els estands d'1 any representen l'etapa inicial d'establiment; Els rodals de 3 anys representen una etapa de creixement vigorosa amb processos de rizosfera actius; i les grades de 6 anys representen una etapa relativament estable. A partir de les diferències en les etapes de desenvolupament de l'hoste, vam comparar la variació química de l'exsudat arrel entre les edats del rodal i la seva relació ambCistanchegerminació de llavors.
1.2.1 Recollida d'exsudat arrel
Els exsudats d'arrel es van recollir mitjançant un mètode d'extracció de camp in situ. En cada parcel·la d'edat, es van seleccionar individus de saxaul amb un estat de creixement similar i sense plagues o malalties evidents. Es van mostrejar tres plantes per edat de rodal com a rèpliques biològiques. Les arrels es van excavar acuradament al voltant de la base de la planta, minimitzant les lesions mecàniques. La terra adherida es va eliminar suaument; les arrels es van esbandir amb aigua desionitzada; després, les arrels es van empassar i es van tornar a enterrar in situ durant un pretractament de 24 hores.
Després del pretractament, es van eliminar les arrels i es van esbandir suaument de nou amb aigua desionitzada. Els segments d'arrel es van embolicar amb paper de filtre humit per mantenir la humitat, es van col·locar en tubs de centrífuga de 50 ml, es van segellar amb parafilm i es van tornar a enterrar in situ. Després de 24 h, es van recollir els segments d'arrel embolicats amb paper de filtre, es van mantenir en gel i es van transportar al laboratori.
Al laboratori, es van afegir 100 ml d'aigua desionitzada i les mostres es van agitar durant 30 min per a l'extracció. L'extracte es va filtrar al buit, es va concentrar a pressió reduïda i es va emmagatzemar a -80 graus per a posteriors anàlisis metabolòmiques no dirigides LC-MS. Els mateixos extractes també es van utilitzar per a assajos de tractament de llavors.
1.2.2 Mostreig de sòls i determinació de les propietats fisicoquímiques del sòl
Es van recollir mostres de sòl simultàniament amb exsudats d'arrel. Les mostres es van assecar a l'aire de forma natural, es van eliminar les impureses i es van passar per un tamís de 2 mm per a mesures fisicoquímiques incloent pH, nitrogen total (TN), fòsfor total (TP), potassi total (TK), nitrogen hidrolizable alcalí (AN), fòsfor disponible (AP), potassi disponible (AK) i matèria orgànica del sòl (SOM). Els mètodes detallats es proporcionen a la taula 1.
Taula 1. Indicadors fisicoquímics del sòl i mètodes analítics
| Indicador | Abreviatura | Mètode analític |
|---|---|---|
| pH | - | Mètode potenciomètric |
| Nitrogen total | TN | Mètode Kjeldahl |
| Fòsfor total | TP | Fusió de NaOH - colorimetria d'antimoni de molibdè (espectrofotometria) |
| Potassi total | TK | Mètode de fusió de NaOH |
| Nitrogen hidrolitzable alcalí | AN | Mètode de difusió alcalina |
| Fòsfor disponible | AP | Mètode espectrofotomètric |
| Potassi disponible | AK | Mètode d'extracció d'acetat d'amoni |
| Matèria orgànica del sòl | SOM | Mètode d'oxidació del dicromat de potassi |
1.3 LC–MS Metabolòmica no dirigida i preprocessament de dades
Les mostres d'exsudat d'arrel es van analitzar mitjançant cromatografia líquida d'ultra alt rendiment-espectrometria de masses d'alta resolució (UHPLC-HRMS) tant en modes d'ionització electrospray positiva com negativa. Les dades en brut es van sotmetre a l'extracció de pics, la correcció del temps de retenció, l'alineació de pics, el maneig de valors perduts i la normalització abans de les anàlisis aigües avall.
Es van utilitzar mostres de control de qualitat i controls en blanc per eliminar pics d'interferència de fons i funcions amb poca reproductibilitat per millorar l'estabilitat i la comparabilitat de les dades. La identificació i l'anotació de metabòlits es van basar principalment en patrons de fragmentació precisos de massa, temps de retenció i MS/MS, emparellats amb HMDB, METLIN, MassBank i mapejats amb KEGG per a l'anàlisi de la via. Els resultats de l'anotació es van filtrar mitjançant la concordança de confiança i es va realitzar una categorització de classe química i un resum a nivell de via.
1.4 CistancheExperiment de germinació de llavors
1.4.1 Pretractament de llavors
RecollidaCistancheLes llavors es van col·locar a 30 graus en una incubadora a temperatura constant durant 1 h. Es van eliminar les capes de llavors i les llavors es van esterilitzar a la superfície en hipoclorit de sodi al 2% durant 15 min, es van esbandir tres vegades amb aigua destil·lada estèril i es van assecar sobre paper de filtre estèril.
1.4.2 Pre-experiment i determinació de les condicions basals de pro-germinació
Per garantir la comparabilitat entre els tractaments amb exsudats de diferents edats, es va realitzar un preexperiment per examinar les condicions d'addició de la giberel·lina i la fluridona. A partir dels resultats de les proves prèvies, es va seleccionar una combinació amb un millor rendiment de germinació i repetibilitat estable com a condició basal de pro-germinació: addició d'1 ml d'1 g·L-1^{-1}-1 giberelina i 1 ml de 10 mg·L-1^{-1}-1 fluridona.
1.4.3 Tractaments amb exsudats d'arrels de diferents edats de rodal
Sota la condició de pro-germinació basal unificada, es van afegir volums iguals de mostres d'exsudat d'arrel de les rodalies de saxaul d'1, 3 i 6 anys per comparar-les.CistancheRespostes de germinació de llavors. Aquest estudi es va centrar en els efectes del tractament dels exsudats de diferents edats de plantació i no va incloure un gradient de concentració d'exsudats.
Per a cada tractament, es van col·locar 50 llavors pretractades en plaques de Petri mitjançant el mètode de paper de filtre i es van incubar a 25 graus a la foscor. La taxa de germinació es va registrar després de 10 dies. Es va utilitzar una longitud de radícula (tub germinal) > 1 mm com a criteri de germinació. Cada tractament va tenir tres rèpliques.
1.5 Anàlisi estadística
Després del preprocessament i la normalització, les dades de metabolòmica es van analitzar mitjançant l'anàlisi de clúster jeràrquic, PCA i OPLS-DA per avaluar les diferències generals entre les edats de l'estand. Es van examinar els metabòlits diferencials mitjançant VIP> 1 i P <0, 05. Es van utilitzar diagrames de Venn, diagrames de volcans, mapes de calor agrupats i anàlisis d'enriquiment de la via KEGG per interpretar les principals característiques metabòliques diferencials.
Cistancheles taxes de germinació de llavors es van analitzar mitjançant ANOVA unidireccional; es van realitzar comparacions post hoc mitjançant la prova de Tukey. El nivell de significació es va establir en =0.05\\alpha=0.05 =0.05.
2 Resultats i anàlisi
2.1 Característiques fisicoquímiques del sòl
Els indicadors fisicoquímics del sòl van mostrar alguna variació entre les diferents edats del sòl, però la magnitud global del canvi va ser limitada (taula 2). Els sòls eren alcalins a totes les parcel·les, amb un pH que oscil·lava entre 8,35 i 8,83. Els continguts de nitrogen total, fòsfor total, potassi total i matèria orgànica eren generalment baixos. Les grades de 3 anys tenien TN, TK, SOM i AK relativament més alts; les grades de 6 anys tenien TP i AP lleugerament superiors; i les rodalies d'1 any tenien un AN relativament més alt. En general, els fons del sòl van fluctuar una mica entre les edats del rodal sense una tendència direccional consistent. Per tant, les anàlisis posteriors es van centrar principalment en les diferències arrel-exsudat i la seva correspondència ambCistancheRespostes de germinació de llavors.
Taula 2. Propietats fisicoquímiques del sòl
| Tractament | pH | TN (g·kg⁻¹) | TP (g·kg⁻¹) | TK (g·kg⁻¹) | AN (mg·kg⁻¹) | AP (mg·kg⁻¹) | AK (mg·kg⁻¹) | SOM (g·kg⁻¹) |
|---|---|---|---|---|---|---|---|---|
| AO | 8.83 | 0.129 | 0.591 | 6.76 | 11.672 | 7.171 | 159.783 | 2.660 |
| AT | 8.35 | 0.165 | 0.604 | 10.69 | 9.114 | 7.381 | 377.900 | 3.186 |
| AS | 8.82 | 0.101 | 0.649 | 7.08 | 10.697 | 8.086 | 185.962 | 2.547 |
Notes:AO=1-estand d'any; AT=3-any stand; AS=6-any stand.
2.2 Efectes dels exsudats d'arrels de diferents edats del rodalCistancheGerminació de llavors
CistancheLes taxes de germinació de llavors difereixen significativament entre els tractaments amb exsudats d'arrels de diferents edats de plantació (figura 1). El tractament amb exsudats de rodal (AT) de 3 anys va produir la taxa de germinació més alta amb un 84,66% ± 1,15%. Els tractaments d'1 any (AO) i de 6 anys (AS) van donar un 80,89% ± 2,04% i 80,67% ± 0,67%, respectivament. L'ANOVA unidireccional va indicar una diferència significativa entre els tractaments (P=0.022). La prova post hoc de Tukey va demostrar que l'AT era significativament superior a l'AO (P=0.038) i l'AS (P=0.030), mentre que l'AO i l'AS no difereixen significativament (P=0.980).

Fig. 1 Diferències en la taxa de germinació de llavors de Cistanche deserticola sota tractaments amb exsudats d'arrel de poblacions de Haloxylon ammodendron de diferents edats
Aquests resultats suggereixen que durant el període de la finestra de primavera, els exsudats d'arrel de diferents edats de plantació corresponen a diferències clares enCistancheLes respostes a la germinació de les llavors i els exsudats dels rodals de 3 anys mostren un potencial de promoció de la germinació més fort. Per explicar més aquestes diferències, a continuació vam analitzar la separació global del perfil del metabòlit i les característiques metabòliques diferencials.
2.3 Diferències generals en els exsudats d'arrels entre les edats del rodal
2.3.1 Separació global dels perfils metabòlics arrel-exsudat
Els perfils metabòlics dels exsudats d'arrel es van diferenciar clarament entre les edats del rodal. El mapa de calor global (figura 2) va mostrar que la majoria de mostres dins de la mateixa edat d'estand es van agrupar a la mateixa branca, cosa que indica una bona consistència dins del grup. Les mostres de diferents edats del rodal van mostrar patrons d'agrupament relativament clars, cosa que suggereix que la composició de l'exsudat es va reorganitzar amb l'edat del rodal.
Els resultats de la PCA (figura 3) van indicar que els dos primers components principals explicaven el 46,5% de la variància total; PC1 i PC2 van explicar el 32,1% i el 14,4%, respectivament. Les mostres de diferents edats del rodal van mostrar distribucions distingibles a l'espai d'ordenació. En particular, les mostres d'1 any van mostrar una tendència de distribució global diferent de les mostres de 3 i 6 anys, cosa que indica una diferenciació estructural en la composició global de l'exsudat amb l'edat del rodal. Tot i que es va mantenir una certa variabilitat dins del grup, la tendència de separació relacionada amb l'edat era clara.

2.3.2 Discriminació entre grups
Per comparar encara més les diferències entre les edats de l'estand, es van realitzar comparacions per parelles (AO vs. AT, AO vs. AS, AT vs. AS) a partir de dades en mode d'ions negatius (figura 4). Les tres comparacions van mostrar una separació clara i una bona agrupació de rèpliques biològiques, demostrant diferències metabòliques estables entre les edats de la planta.
Tots els models OPLS-DA van mostrar un bon ajust i un bon rendiment predictiu, amb R2Y=0.998-1.000 i Q2=0.663-0.873, cosa que indica una discriminació sòlida de mostres d'exsudat d'arrel entre les edats del sòl. La separació va ser més pronunciada entre AS i AO, cosa que suggereix la major diferència compositiva global entre els exsudats de suport d'1 i 6 anys. AT també va mostrar una separació estable d'AO i AS, cosa que indica que els exsudats de 3 anys ja tenen característiques específiques de l'etapa diferents. En general, els perfils dels metabòlits d'exsudat d'arrel eren molt discriminables entre les edats de la planta, donant suport a les anàlisis aigües avall dels metabòlits diferencials i la seva vinculació amb les diferències de germinació.

Fig. 3 Anàlisi dels components principals

Fig. 4 Comparació per parelles de les puntuacions d'OPLS-DA d'exsudats d'arrel de Haloxylon ammodendron de diferents edats
2.4 Principals característiques metabòliques diferencials dels exsudats d'arrel de Saxaul
2.4.1 Nombre de metabòlits diferencials i característiques compartides
Cada comparació per parelles entre edats d'estada contenia un cert nombre de metabòlits diferencials (figura 5). El nombre més gran es va produir en AT vs. AO, amb 31 metabòlits diferencials. AS vs. AO i AS vs AT tenien 24 i 18 metabòlits diferencials, respectivament, cosa que indica que les diferències entre els exsudats de 3 anys i 1 any eren les més pronunciades.
Es van compartir set metabòlits diferencials entre les tres comparacions, cosa que indica un conjunt relativament estable de metabòlits que responen als canvis d'edat. Mentrestant, cada comparació va conservar alguns metabòlits diferencials únics, reflectint clares característiques específiques de l'etapa en els canvis d'exsudat. En general, les diferències d'edat es van expressar no només en el recompte de metabòlits, sinó també en una estructura on coexistien metabòlits diferencials compartits i específics de l'etapa.

Figura . 5 Diagrama de Venn de metabòlits diferencials en exsudats d'arrel d'Haloxylon ammodendron a través d'edats
2.4.2 Patrons de canvi en els metabòlits diferencials
Els diagrames de volcans i els mapes de calor agrupats van indicar patrons modulars de canvi en els exsudats d'arrel a través de les edats dels rodals. En les tres comparacions (figura 6), es van distribuir metabòlits significatius a banda i banda de les parcel·les del volcà, cosa que indica tant metabòlits regulats a l'alça com a la baixa entre les edats. Moltes característiques significatives van mostrar grans canvis de plec i una gran importància, cosa que suggereix que la separació de grups va ser impulsada conjuntament per un conjunt de canvis metabòlics concentrats en lloc de variacions individuals disperses.
A partir de les anotacions de metabòlits, les principals categories diferencials es van concentrar en sucres, molècules relacionades amb la vitamina B6, flavonoides/fenòlics i molècules relacionades amb lípids. Els metabòlits diferencials representatius incloïen sacarosa, isopiridoxal, linolenat (18:3), PA 40:7, metil giberel·lina A9 i secologanina.
AT vs. AO contenien el major nombre de metabòlits diferencials, cosa que suggereix un canvi més fort de la producció química d'un any a 3 anys. Les diferències entre AT i AS també eren estables, cosa que indica que l'etapa de 3 anys no és simplement una transició lineal entre els estands d'1 any i 6 anys, sinó que té característiques específiques de l'etapa diferents. En general, les diferències entre les edats de l'estand reflectien principalment canvis coordinats entre les categories de metabòlits anteriors en lloc de fluctuacions aïllades en metabòlits únics.

Fig. 6 Gràfics volcànics de metabòlits diferencials en exsudats d'arrels d'Haloxylon ammodendron durant les edats del rodal
Un mapa de calor de metabòlits diferencials representatius (figura 7) va mostrar a més una bona agrupació de rèpliques biològiques i una clara separació entre les edats d'estada, cosa que indica que les diferències d'edat es van reflectir directament en els perfils de metabòlits diferencials. El grup de 3 anys (AT) va mostrar similituds parcials amb AO o AS en diferents mòduls de metabòlits, però va conservar les seves pròpies característiques diferents. Alguns metabòlits van assolir el màxim en AT mentre es van mantenir més baixos en AO i AS; altres eren més baixos en AT però més alts en AO o AS. Així, l'etapa de 3 anys no va seguir un simple patró monòton d'augment/disminució, sinó una clara reorganització específica de l'etapa. En particular, les molècules relacionades amb la vitamina B6 (per exemple, isopiridoxal, piridoxat), flavonoides/fenòlics (per exemple, quercetina, isoquercitrina, escopolina) i molècules relacionades amb lípids (per exemple, linolenat 18:3, PA 40:7, FA 18:1) mostren un patró de discriminació coherent amb un patró modular O2 consistent; anàlisis.

Fig. 7 Mapa de calor de agrupació jeràrquica de metabòlits diferencials representatius
2.4.3 Principals vies metabòliques implicades
L'anàlisi de la via KEGG va indicar que les diferències relacionades amb l'edat en els exsudats d'arrel de saxaul van implicar principalment el metabolisme dels lípids, el metabolisme de vitamines/cofactors i el metabolisme secundari relacionat amb els flavonoides (figura 8). El metabolisme de l'àcid alfa-linolènic va aparèixer amb un factor d'impacte de la via relativament alt, que representa una via destacada relacionada amb els lípids sota diferències d'edat. El metabolisme de la vitamina B6 també va mostrar una gran importància, cosa que suggereix canvis substancials en les molècules petites relacionades amb el cofactor i l'homeòstasi redox.
En el metabolisme secundari, la biosíntesi de flavonoides, la biosíntesi de flavones i flavonols i la degradació dels flavonoides es van enriquir, cosa que indica que el mòdul fenòlic-flavonoide és una direcció important de la variació de l'edat. A més, les vies de compostos aromàtics com la degradació de benzoats van mostrar certes respostes. En general, les diferències derivades de l'edat en els exsudats d'arrel de saxaul es van estructurar principalment al voltant del metabolisme dels lípids, el metabolisme de la vitamina B6 i el metabolisme secundari de flavonoides/fenòlics.
2.5 Metabòlits diferencials representatius seleccionats en funció dels fenotips de germinació
Per aclarir encara més els vincles entre les diferències d'exsudat iCistanchefenotips de germinació, els metabòlits diferencials es van integrar amb patrons de velocitat de germinació. Els assajos de germinació van demostrar que el tractament AT tenia la taxa de germinació més alta, mentre que AO i AS eren més baixos i no difereixen significativament. Aquest patró suggereix que els exsudats de saxaul de 3 anys poden contenir components químics més favorables per a la promocióCistanchegerminació de llavors.
A partir d'aquest fenotip, vam prioritzar els metabòlits que (i) apareixien tant en comparacions AT vs. AO i AT vs. AS i (ii) mostraven tendències de canvi consistents amb una germinació més alta (taula 3). Aquestes característiques diferencials candidates es van concentrar principalment en sucres, molècules relacionades amb lípids, molècules relacionades amb la vitamina B6 i flavonoides/fenòlics, i es van associar amb el metabolisme de l'àcid alfa-linolènic, el metabolisme de la vitamina B6 i les vies relacionades amb els flavonoides. Aquests resultats indiquen una clara agrupació de categories entre les característiques metabòliques candidates consistents amb una germinació més alta, cosa que suggereix que aquests metabòlits o vies relacionades poden contribuir al fenotip de germinació.

Fig. 8 Diagrama de bombolles dels factors que influeixen en la via metabòlica
Pestanya. 3 Correspondència entre les característiques diferencials dels exsudats d'arrels de les rodalies d'Haloxylon ammodendron de diferents edats i la germinació de llavors de Cistanche deserticola
| Grup de comparació | Tipus de resposta a la germinació | Principals categories diferencials | Característiques diferencials | Metabòlits diferencials representatius |
|---|---|---|---|---|
| AT vs AO | Velocitat de germinació aAT més altqueAO | Sucres, relacionats amb la vitamina B6, flavonoides/àcids fenòlics, lípids | Important reorganització modularen exsudats a3 anyssuport edat | sacarosa; Isopiridoxal; piridoxat; quercetina; Isoquercitrina; Linolenat (18:3) |
| AS vs AT | Velocitat de germinació aCOM més baixqueAT | Sucres, flavonoides, giberelines | Diferenciació entre6 anysi3 anyses troba a lasenyalitzacióimetabolisme secundarinivells | sacarosa; Isoquercitrina; Metil giberelina A9 |
| AS vs AO | Diferència de velocitat de germinacióno significatiu | Relacionats amb la vitamina B6, lípids | Grans diferències metabòliquesentre1 anyi6 anyss'atura, peròcap diferència significativa de germinació | Isopiridoxal, etc. |
3 Discussió
3.1 L'edat del suport impulsa la diferenciació química dels exsudats d'arrel de Saxaul
Els exsudats de les arrels de les plantes no són estàtics; s'ajusten dinàmicament amb l'etapa de desenvolupament, l'assignació de recursos i els canvis ambientals de la rizosfera. McLaughlin et al. [22] va demostrar que els exsudats d'arrel varien substancialment entre les espècies de plantes i les escales de temps, cosa que indica una forta dinàmica espaciotemporal. Chen et al. [23] va informar a més que tant l'edat dels arbres com la temporada alteren significativament les estratègies d'exsudació de les arrels i la composició dels metabòlits a les plantacions d'avets xinesos, demostrant clares diferències d'edat en els resultats metabòlics. Aquests estudis donen suport a una base fisiològica-ecològica per a la diferenciació de la química de l'arrel-exsudat impulsada per l'etapa de desenvolupament.
En aquest estudi, els exsudats d'arrel de saxaul van mostrar una clara diferenciació entre les edats d'estada a nivell global del perfil del metabòlit. La agrupació de mapes de calor, la PCA i l'OPLS-DA van demostrar una separació estable entre les edats de l'estand, cosa que indica que l'edat de l'estand pot impulsar la reorganització química específica de l'etapa dels exsudats d'arrel de saxaul. Això concorda amb el coneixement existent que l'etapa de creixement de les plantes afecta la composició de l'exsudat i suggereix que en el sistema hoste saxaul-Cistanche, la variació de l'edat pot ser un factor ecològic important que configura el fons dels senyals derivats de les arrels.
A més, els canvis d'edat corresponen no només a l'etapa de desenvolupament de l'amfitrió, sinó també a canvis en el fons ambiental de la rizosfera. Els nivells de nutrients del sòl, el pH, la matèria orgànica i les condicions de salinitat poden influir en l'adquisició de nutrients de les plantes, els patrons d'assignació de carboni i l'estabilitat de la rizosfera, regulant així encara més la composició i els processos d'alliberament dels exsudats d'arrels.
3.2 Els exsudats de Saxaul de 3 anys corresponen a SuperiorCistancheTaxes de germinació de llavors
La germinació de llavors de plantes paràsites depèn molt dels senyals químics derivats de l'hoste. Nelson [16] va assenyalar que les plantes arrel-parasitàries d'Orobanchaceae normalment es basen en molècules senyal alliberades per l'arrel hoste per detectar la presència de l'hoste i iniciar la germinació; aquesta "germinació induïda per l'hoste" és un mecanisme adaptatiu clau.
En aquest estudi,CistancheLa taxa de germinació de llavors va ser més alta amb el tractament amb exsudats de saxaul de 3 anys, significativament més alta que els tractaments amb exsudats d'1 any i 6 anys, mentre que no es va observar cap diferència significativa entre els tractaments d'1 any i 6 anys. Això indica que els diferents amfitrions en edat d'estada probablement proporcionen no només quantitats diferents d'exsudats, sinó fons químicament diferents que promouen la germinació. El fet que AT vs. AO tinguessin els metabòlits més diferencials suggereix que la reorganització química d'un any a tres anys va ser la més gran, d'acord amb la direcció de la germinació més alta.
Aquest patró pot relacionar-se amb diferències en l'etapa de creixement del saxaul i les estratègies d'assignació de recursos corresponents. El saxaul d'un any es troba en una fase inicial d'establiment, on les plantes no estan completament estabilitzades, els sistemes d'arrels i l'adquisició de recursos són relativament limitats i els resultats metabòlics poden estar més centrats en el manteniment de l'autocreixement. El saxaul de sis anys es troba en una etapa relativament madura, on l'assignació de recursos pot canviar cap al manteniment, l'estabilitat estructural i l'adaptació ambiental, donant lloc a estratègies d'exsudació més estables. En canvi, el saxaul de 3 anys es troba generalment en una etapa de creixement vigorosa, amb una expansió de l'arrel més activa, captació de nutrients i metabolisme subterrani, cosa que fa que sigui més probable que formi un perfil d'exsudat arrel més ric i variable. Sobre aquesta base, la pronunciada reorganització del metabòlit i la taxa de germinació més alta en el tractament de 3 anys poden reflectir un entorn de senyal de rizosfera més favorable per iniciarCistanchegerminació de llavors durant el període de la finestra de primavera.
3.3 Principals característiques metabòliques diferencials coherents amb les respostes de germinació
La metabolòmica revela eficaçment els canvis del perfil dels metabòlits en mostres complexes. Quan s'integra amb l'anàlisi d'enriquiment de vies, permet la identificació a nivell del sistema de les direccions de canvi importants. Estudis anteriors [31–33] suggereixen que la combinació dels resultats de la metabolòmica amb fenotips funcionals com la germinació de llavors ajuda a orientar metabòlits candidats o vies coherents amb els canvis fenotípics. Per als exsudats d'arrel, una estratègia de "fenotip primer, rastreig de metabòlits" és especialment útil per identificar les característiques metabòliques candidates associades a efectes biològics específics.
En aquest estudi, el cribratge guiat per fenotips va mostrar que les característiques diferencials representatives consistents amb la taxa de germinació més alta en el tractament de 3 anys es van concentrar principalment en sucres, molècules relacionades amb la vitamina B6, flavonoides/fenòlics i molècules relacionades amb lípids, que inclouen metabolisme de l'àcid alfa-linolènic i metabolisme de la ruta de la vitamina B6. Mecànicament, els sucres poden reflectir canvis en el subministrament i l'assignació de carboni de la rizosfera; Les molècules relacionades amb els lípids poden relacionar-se amb la remodelació de lípids de membrana i la regulació del senyal d'estrès; els flavonoides/fenòlics poden participar en el reconeixement hoste-paràsit i en la transmissió del senyal de la rizosfera; i les molècules relacionades amb la vitamina B6 poden estar relacionades amb l'homeòstasi metabòlica i l'amortiment de l'estrès. Aquestes categories metabòliques van mostrar canvis coordinats en el grup AT.
CistancheLes investigacions relacionades indiquen que els àcids fenòlics derivats de l'hoste poden influir en els processos d'inducció, i els metabòlits secundaris fenòlics/aromàtics a les arrels de l'hoste poden tenir un paper en les respostes parasitàries [14]. Tot i que el present estudi no pot demostrar directament que un únic metabòlit és el factor decisiu que impulsa la germinació millorada, els canvis agrupats en categories observats en el grup de 3 anys suggereixen que l'avantatge que promou la germinació deriva més probablement d'una reorganització coordinada de múltiples classes de metabòlits que formen un fons químic compost, en lloc d'un augment accidental d'una sola molècula.
3.4 Implicacions pràctiques i limitacions de l'estudi
Des d'una perspectiva de pràctica de producció, els resultats suggereixen que durant el període de la finestra de primavera, el saxaul de 3 anys pot tenir un millor potencial perCistancheinoculació, proporcionant una referència per a la selecció de l'edat de l'hoste al subboscCistanchecultiu i possibles direccions de desenvolupament tècnic per millorar l'èxit de la inoculació.
Tanmateix, aquest estudi es basa en un sol mostreig de primavera, i les conclusions reflecteixen principalment les relacions durant la finestra de primavera; l'extrapolació directa a tot l'any encara no s'admet. A més, el paper del fons del sòl en la configuració de les característiques dels metabòlits de l'exsudat continua sent en gran mesura inferencial i s'hauria de validar encara més mitjançant anàlisis de correlació, experiments controlats o enfocaments multiòmics. La metabolòmica no dirigida també té limitacions, com ara la interferència d'isòmers i la confiança d'identificació limitada per a alguns metabòlits. Per tant, les molècules relacionades amb els lípids, la vitamina B6 i els flavonoides/fenòlics s'han de considerar direccions candidates en lloc de factors clau d'inducció totalment confirmats. Finalment, els resultats pràctics de la inoculació estan influenciats per múltiples factors, com ara l'establiment de paràsits, la formació d'haustori, el creixement posterior, les condicions de l'aigua i la sal del camp i les pràctiques de gestió. Es necessita més treball que combini assaigs d'inoculació de camp, enquestes d'establiment de parasitisme i validació específica dels metabòlits candidats clau per enfortir la traducció a la producció del món real.
4 Conclusions
La reorganització química de la composició de l'exsudat d'arrel de saxaul a través de les edats del rodal es va correspondre clarament amb diferències enCistancherespostes de germinació de llavors, destacant la importància de l'etapa de desenvolupament de l'hoste en la regulació dels fenotips de germinació de llavors paràsites. A l'abril, els perfils metabòlics de l'exsudat d'arrel van variar notablement entre les edats del rodal. Els exsudats de saxaul de 3 anys van mostrar les diferències més pronunciades i van correspondre a les més altes.Cistanchevelocitat de germinació de les llavors. Les característiques diferencials representatives consistents amb una germinació més alta es van concentrar principalment en sucres, molècules relacionades amb la vitamina B6, flavonoides / fenòlics i molècules relacionades amb lípids, que inclouen el metabolisme de l'àcid alfa-linolènic, el metabolisme de la vitamina B6 i les vies relacionades amb els flavonoides. La relació stand-edat-exsudat-germinació no va seguir una simple millora lineal; era més probable que l'edat mitjana de l'estada formi un fons químic consistent amb una resposta de germinació més alta.
Aportacions de l'autor
Zhao Zhen: conceptualització, metodologia, investigació, curació de dades, anàlisi de dades, redacció, visualització.
Fan Jinglong: metodologia, revisió i edició, visualització, supervisió, administració de projectes, adquisició de finançament.
Dong Weikang: investigació, curació de dades.
Zhou Zhibin: recursos, supervisió, adquisició de finançament.
Li Bingwen, Wang Shijie: metodologia, recursos, supervisió, adquisició de finançament.