
Regulació dinàmica de la diafonia del reticle endoplasmàtic mitocondrial durant l'homeòstasi i l'envelliment de les cèl·lules mare
Jul 14, 2023
La teràpia cel·lular exerceix un profund potencial terapèutic per curar un ampli espectre de malalties. Les cèl·lules mare adultes resideixen dins d'un nínxol dinàmic especificat in vivo, que és essencial per al manteniment homeostàtic continu dels teixits mitjançant l'equilibri de l'auto-renovació amb la selecció del llinatge. Mentrestant, les cèl·lules mare adultes poden ser multipotents o unipotents i estan presents tant en estats quiescents com en estats de divisió activa in vivo dels mamífers, que poden canviar entre si en resposta a senyals biofísics mitjançant mecanismes mediats per mitocondris, com ara alteracions en la respiració mitocondrial. i metabolisme. En general, les cèl·lules mare faciliten la reparació del teixit després de l'homing específic del teixit mitjançant diversos mecanismes, com ara la immunomodulació del microambient local, la diferenciació en cèl·lules funcionals, l'"empoderament" cel·lular mitjançant la secreció paracrina, la immunoregulació i la transferència intercel·lular mitocondrial. Curiosament, s'han informat característiques específiques de la font cel·lular entre diferents cèl·lules mare adultes derivades de teixits amb diferents propietats funcionals a causa dels diferents microambients in vivo, així com propietats funcionals diferencials en diferents vehicles extracel·lulars derivats de cèl·lules mare derivades de teixits, mitocondrials. metabolisme i capacitat de transferència mitocondrial. Aquí, vam resumir la comprensió actual dels papers de la dinàmica mitocondrial durant l'homeòstasi i l'envelliment de les cèl·lules mare i la diferenciació específica del llinatge. A més, vam proposar possibles característiques de signatura molecular mitocondrial úniques entre diferents cèl·lules mare derivades de la font i associacions potencials entre l'envelliment de les cèl·lules mare i la comunicació mitocondria-reticle endoplasmàtic (ER), així com possibles estratègies noves per a la intervenció contra l'envelliment i l'envelliment saludable.
El glicòsid de cistanche també pot augmentar l'activitat de la SOD en els teixits del cor i del fetge, i reduir significativament el contingut de lipofuscina i MDA a cada teixit, eliminant eficaçment diversos radicals reactius d'oxigen (OH-, H₂O₂, etc.) i protegint contra els danys de l'ADN causats. per radicals OH. Els glucòsids feniletanoides de Cistanche tenen una forta capacitat d'eliminació dels radicals lliures, una capacitat reductora superior a la de la vitamina C, milloren l'activitat de SOD en la suspensió d'esperma, redueixen el contingut de MDA i tenen un cert efecte protector sobre la funció de la membrana espermàtica. Els polisacàrids de Cistanche poden millorar l'activitat de SOD i GSH-Px en eritròcits i teixits pulmonars de ratolins senescents experimentalment causats per D-galactosa, així com reduir el contingut de MDA i col·lagen al pulmó i el plasma, i augmentar el contingut d'elastina. un bon efecte d'eliminació de DPPH, allarga el temps d'hipòxia en ratolins senescents, millora l'activitat de SOD al sèrum i retarda la degeneració fisiològica del pulmó en ratolins senescents experimentalment Amb la degeneració morfològica cel·lular, els experiments han demostrat que Cistanche té la bona capacitat antioxidant. i té el potencial de ser un fàrmac per prevenir i tractar malalties de l'envelliment de la pell. Al mateix temps, l'echinacòsid a Cistanche té una capacitat significativa per eliminar els radicals lliures de DPPH i té la capacitat d'eliminar espècies reactives d'oxigen i prevenir la degradació del col·lagen induïda pels radicals lliures, i també té un bon efecte reparador sobre el dany anònic dels radicals lliures de timina.
Feu clic a Suplement de Cistanche Tubulosa
【Per a més informació:george.deng@wecistanche.com/WhatApp:86 13632399501】
FETS
● El nínxol de cèl·lules mare és essencial per prendre decisions sobre el destí cel·lular mitjançant la regulació de l'homeòstasi de les cèl·lules mare i la dinàmica mitocondrial de fusió i fissió mitjançant l'equilibri de l'autorenovació i la diferenciació específica del llinatge, així com la quiescència i l'activació de les cèl·lules mare.
● Dins de la sang perifèrica existeixen mitocondris lliures de cèl·lules circulants, que poden estar implicats en diversos processos fisiopatològics.
● Els mitocondris són orgànuls molt dinàmics que canvien la seva morfologia en resposta a senyals cel·lulars i estats de diferenciació.
● La diafonia mitocondria-reticle endoplasmàtic està implicada en la progressió de l'envelliment.
● La classificació i distribució asimètrica dels mitocondris envellits i joves estan implicades de manera crítica en la regulació de la mare de les cèl·lules mare.
PREGUNTES OBERTES
●El declivi funcional mitocondrial està implicat en la progressió de l'envelliment de les cèl·lules mare mitjançant la localització subcel·lular depenent de l'edat i la redistribució dels mitocondris, provocant així la pèrdua de les propietats de les cèl·lules mare?
● Les connexions i transferències mitocondrials estan implicades en les teràpies basades en cèl·lules mitjançant l'intercanvi i la recepció de mitocondris energètics i joves de cèl·lules de teixits danyats de cèl·lules mare funcionals?
● L'acoblament de l'estrès del reticle endoplasmàtic (RE) i la diferenciació cel·lular està associat amb la interacció entre la diafonia mitocondrial-ER?
● És possible alleujar l'envelliment de les cèl·lules mare o aconseguir el rejoveniment de les cèl·lules mare envellides canviant l'estrès prolongat o excessiu del reticle endoplasmàtic (RE) a l'estrès adaptatiu del RE mitjançant la regulació de la funció mitocondrial i el nínxol de cèl·lules mare?
INTRODUCCIÓ
Les teràpies basades en cèl·lules mare exerceixen un profund potencial terapèutic per curar un ampli espectre de malalties [1, 2]. Les cèl·lules mare adultes resideixen en un nínxol dinàmic específic que és essencial per al manteniment homeostàtic continu dels teixits mitjançant l'equilibri de l'auto-renovació amb la selecció del llinatge [3, 4]. Mentrestant, les cèl·lules mare adultes poden ser multipotents o unipotents i estan presents tant en estats quiescents com activament en divisió in vivo dels mamífers, que poden canviar entre si en resposta a diversos senyals intrínsecs o extrínsecs mitjançant mecanismes mediats per mitocondris, com ara alteracions. en la respiració i el metabolisme mitocondrial [4–9]. A més, la coincidència del reticle endoplasmàtic (ER) i els mitocondris, i les seves interconnexions dinàmiques i la diafonia estan implicades en una sèrie de processos cel·lulars, inclosa l'homeòstasi mitocondrial en fusió i fissió, autofàgia i formació d'inflamsoma [10, 11].

Les noves tècniques emergents durant els darrers anys, com la transcriptòmica unicel·lular per a l'anàlisi de la rotació espacial i temporal de certs processos cel·lulars, poden permetre avançar en la nostra comprensió de la regulació gènica dinàmica en el manteniment de cèl·lules mare dins del nínxol de cèl·lules mare, activació i mobilització de cèl·lules mare, llinatge. especificació, fenotips moleculars específics del teixit en cèl·lules mare adultes, identificació dels principals tipus de cèl·lules i la seva localització, així com fonts cel·lulars i espacials de factors de creixement clau i citocines [12–18].
Diversitat i heterogeneïtat dels mitocondris
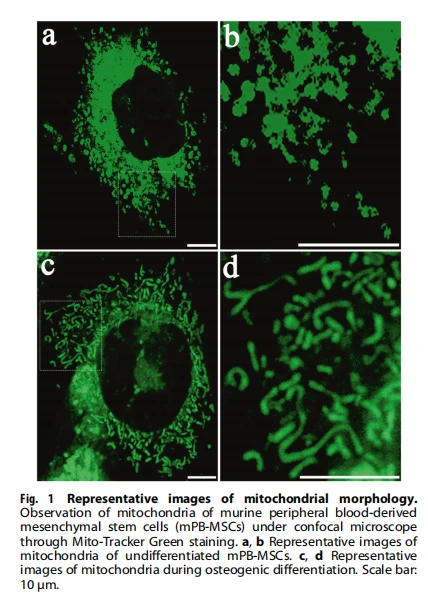
Els mitocondris són orgànuls complexos existents en una xarxa que pateixen continus canvis dinàmics morfològics mitjançant la fissió i la fusió, la qual cosa és crucial per al manteniment de la pluripotència i la capacitat de diferenciació de les cèl·lules mare [19–24]. Els mitocondris solen experimentar canvis dinàmics morfològics continus mitjançant esdeveniments de fissió i fusió controlats per les grans GTPases Drp1, Mfn1, Mfn2 i Opa1 (fusió), que són importants per a la funció mitocondrial, i el seu desequilibri causaria disfunció cel·lular i diverses malalties [25–28] ]. Els canvis metabòlics són essencials per al compromís del llinatge cel·lular durant la diferenciació de cèl·lules mare mesenquimals, acompanyats d'alteracions en la morfologia i la dinàmica mitocondrials [21, 22, 29]. Les característiques morfològiques diferents dels mitocondris de les cèl·lules mare mesenquimals es produeixen durant diferents estats d'especificació del llinatge (Fig. 1).
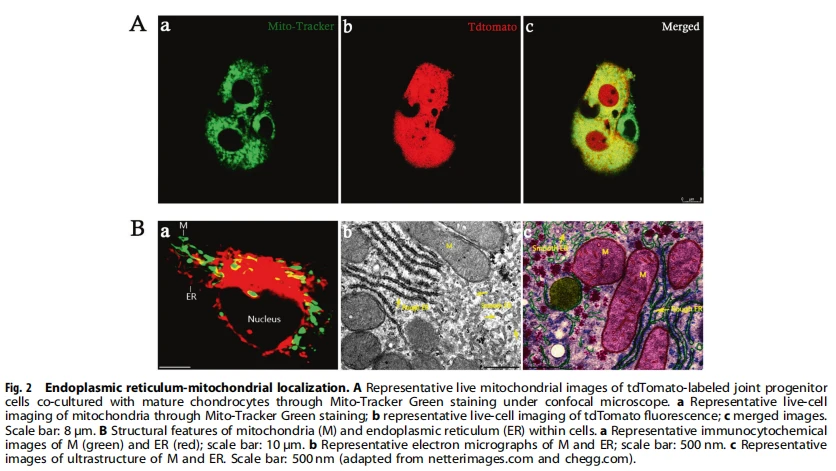
En general, les cèl·lules mare faciliten la reparació del teixit després de l'homing específic del teixit mitjançant diversos mecanismes, com ara la immunomodulació del microambient local, la diferenciació en cèl·lules funcionals [30, 31], l'"empoderament" cel·lular mitjançant la secreció paracrina [32–34], la immunomodulació [32-34] 35, 36] i transferència intercel·lular mitocondrial [37–40]. Estudis recents han demostrat la transferència mitocondrial intercel·lular dins de la xarxa osteòcit-dendrítica [41]. Curiosament, també es van observar possibles connexions i comunicacions mitocondrials entre condròcits madurs co-cultivats i cèl·lules mare ex vivo (Fig. 2A). Mentrestant, s'han informat característiques específiques de la font cel·lular entre diferents cèl·lules mare adultes derivades de teixits amb propietats funcionals diferents [5, 42], així com propietats funcionals diferencials en diferents vehicles extracel·lulars derivats de cèl·lules mare derivades de teixits [43, 44] , metabolisme mitocondrial [45] i capacitat de transferència mitocondrial [46]. Sorprenentment, estudis recents han informat de la presència de mitocondris lliures de cèl·lules circulants a la sang perifèrica, cosa que suggereix la diversitat de les formes existents de mitocondris [47, 48]. Per tant, poden existir diferents patrons d'expressió gènica mitocondrial entre diferents cèl·lules mare derivades de teixits, a causa de l'heterogeneïtat de les cèl·lules mare i diverses poblacions d'ADN mitocondrial (mt-DNA) [48–55]. Simultàniament, la visualització de la replicació dels nucleoides d'ADN mt ha suggerit l'enllaç físic entre l'ER i els mitocondris (Fig. 2B) [56-58]. Per tant, la manipulació de l'ADNmt dins de les cèl·lules pot representar un enfocament potent per al desenvolupament d'intervencions terapèutiques per tractar malalties mitocondrials.
Regulació metabòlica mitocondrial sobre el destí de les cèl·lules mare
En general, es creu que les cèl·lules mare alimenten el desenvolupament i la reparació de teixits, i aquestes activitats estan controlades pel microambient o nínxol local de les cèl·lules mare. S'ha demostrat que poblacions molt heterogènies de cèl·lules mare/progenitores residents resideixen dins d'òrgans i teixits adults [55, 59–62]. Un equilibri adequat entre l'autorenovació i la diferenciació és essencial per a la funció de les cèl·lules mare durant el desenvolupament i l'homeòstasi dels teixits al llarg de la vida [63]. En estat estacionari, les cèl·lules mare adultes són cèl·lules quiescents dins d'un nínxol. S'ha informat que tant les xarxes de senyalització intrínseques com les extrínseques, com la senyalització associada a la dinàmica mitocondrial, s'ha informat que afinen l'autorenovació i la diferenciació de les cèl·lules mare i estan implicades en l'homeòstasi i la reparació dels teixits [64, 65].
En particular, la plasticitat mitocondrial, com el metabolisme mitocondrial i la cadena respiratòria mitocondrial, és vital per a les decisions sobre el destí cel·lular i la funció de les cèl·lules mare [66–69]. El canvi metabòlic dels mitocondris és necessari per a l'activació de les cèl·lules mare i l'activitat del cicle cel·lular [70]. Mentrestant, l'acumulació d'evidències ha suggerit una associació causal entre la disfunció mitocondrial i els principals fenotips associats a l'envelliment. L'auto-renovació de teixits i òrgans en organismes envellits requereix cèl·lules mare, que tenen la capacitat inusual de dividir-se asimètricament en una cèl·lula filla que conserva les propietats de les cèl·lules mare i una altra que es diferencia en un tipus de teixit particular. A més, s'ha informat que els mitocondris es distribueixen de manera passiva durant la mitosi després de l'alliberament dels microtúbuls [71]. És important destacar que la localització subcel·lular i la distribució de mitocondris joves i vells determinen les propietats de la mare a les cèl·lules mare descendents durant les divisions cel·lulars asimètriques. Posteriorment, les cèl·lules filles que conserven la naturalesa de les cèl·lules mare hereten mitocondris joves, mentre que els mitocondris més antics són heretats per les cèl·lules més diferenciades [72]. L'acumulació de mitocondris envellits conduiria a l'envelliment cel·lular i al declivi funcional cel·lular [70, 73]. Mohrin et al. [74] va dilucidar encara més una branca reguladora de la resposta de proteïnes desplegades mitocondrials (UPRmt) que s'acobla al metabolisme energètic cel·lular i a la proliferació a les cèl·lules mare. L'estrès de plegament de proteïnes mitocondrials va desencadenar un punt de control metabòlic que regulava el cicle cel·lular, mentre que la desregulació d'aquesta via va interferir amb la quiescència de les cèl·lules mare i va comprometre el potencial regeneratiu [74]. Per tant, la funció mitocondrial pot representar un determinant important del potencial regeneratiu de les cèl·lules mare.
Les cèl·lules mare tenen un potencial de multidiferenciació en diversos tipus de cèl·lules, cosa que les fa rellevants mèdicament per al tractament de diverses malalties i lesions. No obstant això, encara hi ha un obstacle important de la teràpia amb cèl·lules mare a les clíniques, és a dir, l'eficiència limitada per crear cèl·lules diferenciades terminals totalment funcionals i especialitzades. La dinàmica mitocondrial és crucial per a la determinació del destí cel·lular de les cèl·lules mare [75, 76]. És important destacar que els diferents estats cel·lulars requereixen demandes metabòliques específiques per donar suport a funcions especialitzades [77]. Per tant, es requereix un metabolisme i dinàmica oxidativa mitocondrial eficient per a un compromís de llinatge específic eficient [21, 78–83].
Sorprenentment, estudis recents informen que l'autofàgia mediada per chaperones i un metabòlit relacionat a les cèl·lules mare embrionàries, també conegut com a procés d'autoalimentació, han sorgit com a noves terapèutiques prometedores per a la regeneració de teixits i òrgans danyats [84]. Simultàniament, l'acumulació d'evidències ha indicat associacions estretes entre el metabolisme mitocondrial i la diferenciació de cèl·lules mare [85, 86). Els estudis han demostrat que les cèl·lules mare embrionàries de ratolí classificades pel potencial de membrana mitocondrial de repòs baix i alt (ΔΨmL i ΔΨmH) no es distingeixen pel que fa a la morfologia i els nivells d'expressió dels marcadors de pluripotència, mentre que difereixen notablement en les taxes metabòliques, cosa que suggereix que l'acoblament entre el metabolisme intrínsec. els paràmetres i el destí de les cèl·lules mare poden proporcionar pistes per a noves estratègies d'enriquiment i enfocaments terapèutics de la teràpia amb cèl·lules mare [87, 88]. A més, un estudi recent va demostrar la mobilització del lactat de Mg2 plus intracel·lular, indicant possibles enllaços entre el Mg2 mitocondrial més el transport amb circuits de retroalimentació metabòlica principals i la bioenergètica mitocondrial (Fig. 3) [89].
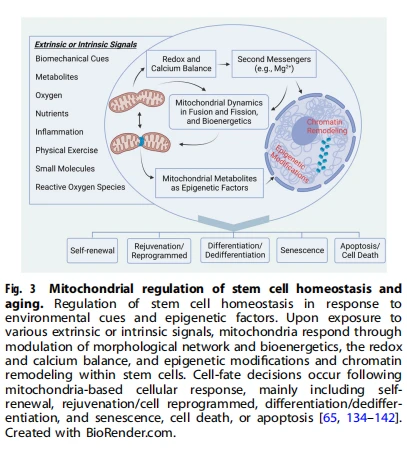
Correlacions entre les funcions mitocondrials i l'envelliment
Les cèl·lules mare adultes són essencials per a l'homeòstasi i la regeneració dels teixits, però són susceptibles a la senescència durant l'envelliment [90–92], acompanyades de microambients envellits al voltant de les cèl·lules mare adultes [93, 94]. Les principals característiques de l'envelliment dels organismes de mamífers inclouen inestabilitat genòmica, desgast dels telòmers, alteracions epigenètiques, pèrdua de proteòstasi, detecció desregulada de nutrients, disfunció mitocondrial, senescència cel·lular, esgotament de cèl·lules mare i comunicació intercel·lular alterada [95]. La degeneració o la disfunció dels teixits i òrgans envellits s'atribueix al deteriorament de les cèl·lules mare adultes [95–97], que pot ser el resultat d'una dinàmica mitocondrial desordenada i una disminució de les funcions mitocondrials [98–100]. L'activitat i el metabolisme mitocondrial són determinants importants per a l'especificació del destí de les cèl·lules mare [87, 101].
Els estudis han demostrat la importància de la forma oxidada del dinucleòtid de nicotinamida adenina cel·lular en l'activitat mitocondrial com a interruptor fonamental per modular la senescència de cèl·lules mare adultes musculars [102, 103]. SIRT3, una sirtuïna de mamífers que regula el paisatge global d'acetilació de les proteïnes mitocondrials i redueix l'estrès oxidatiu, es suprimeix durant l'envelliment. A més, la regulació de SIRT3 en cèl·lules mare hematopoètiques envellides (HSC) va millorar la capacitat regenerativa de les HSC [104]. A més, el manteniment de l'autorenovació d'una població purificada de Tie2 més HSC depèn de l'eliminació mitocondrial [105]. Estudis posteriors han identificat una branca reguladora de la UPRmt, que està mediada per la interacció entre SIRT7 i NRF1, que s'acobla al metabolisme i proliferació de l'energia cel·lular. Desregulació d'un punt de control metabòlic mediat per UPRmt com a factor principal reversible per a l'envelliment de HSC [74]. A més, s'ha informat que la inflamació crònica sistèmica és una característica important de l'envelliment, que està implicada de manera crítica en el procés d'envelliment de les cèl·lules mare [106–108]. Un estudi recent ha descobert l'activació aberrant iniciada per l'estrès mitocondrial de l'inflamsoma NLRP3 com a motor reversible del declivi funcional durant l'envelliment de l'HSC [109]. Mentrestant, els estudis han documentat els papers crucials de PTPMT1 (una fosfatasa mitocondrial semblant a PTEN) en la regulació metabòlica de l'autorenovació i la diferenciació dels HSC [110].
Conversació i envelliment entre mitocondris i ER
En particular, s'ha demostrat que l'estrès ER supervivent s'acobla a la diferenciació i el funcionament alterats dels condròcits, cosa que facilita la supervivència i la recuperació mitjançant la resposta adaptativa de proteïnes desplegades (UPR) durant la fisiopatologia de la condrodisplàsia [111, 112]. A més, els estudis han suggerit la relació íntima entre l'adaptació a l'estrès i el procés d'envelliment [113]. Les respostes a l'estrès i el procés d'envelliment poden compartir característiques i mecanismes comuns sorgits inicialment d'estudis en organismes model [114, 115], on s'ha demostrat que diverses vies moleculars estan implicades en la progressió del procés d'envelliment, inclosa la insulina/factor de creixement semblant a la insulina. , sirtuïnes, dianes de rapamicina (TORs) i quinasa activada per AMP. Així, la inducció intrínseca de programes de defensa de l'estrès i l'adaptació resultant poden convertir-se en una estratègia potencial per augmentar l'esperança de vida [114]. Normalment, l'estrès lleu d'ER activa la UPR adaptativa d'una banda. La UPR adaptativa és favorable a l'alleujament de l'estrès en resposta a l'estrès cel·lular, que recentment s'ha informat que preserva l'auto-renovació dels HSC hematopoètics i preleucèmics mitjançant la senyalització de l'enzim 1 que requereix inositol/X-box-binding proteïna 1 [116]. D'altra banda, però, més enllà d'un cert grau de dany al ER, és a dir, una resposta prolongada de la UPR, desencadenaria vies apoptòtiques (Fig. 4) [117-120]. Els estudis han suggerit que l'esgotament de les proteïnes implicades en la regulació de la diafonia mitocondrial-ER, com la TOR de mamífers, conduiria a un augment de l'apoptosi, l'autofàgia i la disfunció cel·lular [121, 122]. En canvi, augmentar artificialment els contactes ER-mitocondris a les cèl·lules restauraria la viabilitat cel·lular [89, 119, 123, 124]. Els estudis han identificat encara més els papers crítics dels contactes ER-mitocondris en la biogènesi dels compartiments derivats de mitocondris [125–127], que poden tenir un paper essencial en l'adaptació cel·lular a les condicions d'estrès ambiental [127].
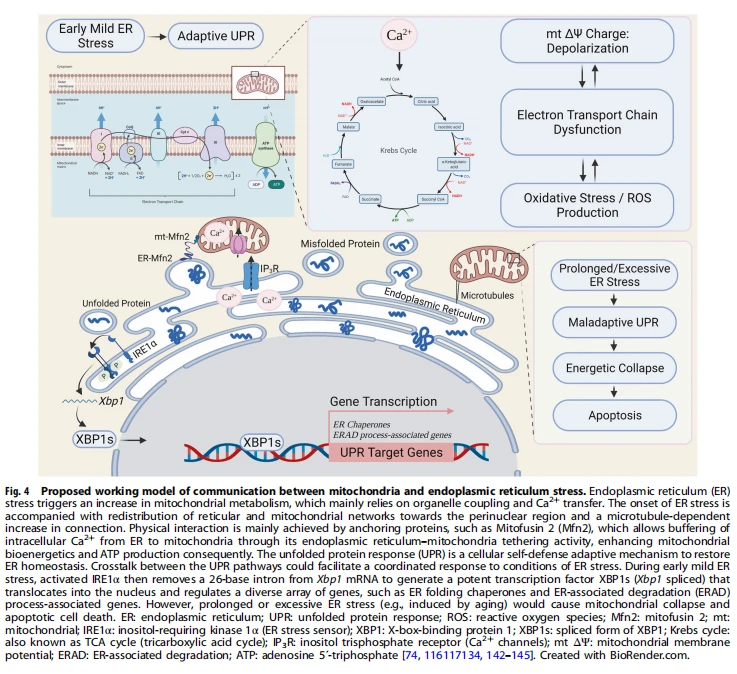
És important destacar que l'envelliment és un dels principals factors causants de l'augment perllongat de l'estrès ER, acompanyat, en conseqüència, de la disfunció mitocondrial [128]. Així, l'atenuació de l'estrès ER és un enfocament potencial per a la millora i la restauració de la funció mitocondrial en organismes envellits. A més, els estudis han suggerit la correlació entre la reorganització espacial dels mitocondris i l'augment dels nivells d'ATP, el consum d'oxigen, el poder reductor i l'augment de Ca2 mitocondrial més la captació [129, 130]. Tanmateix, el desacoblament dels orgànuls o el bloqueig de Ca2 més la transferència van deteriorar la resposta metabòlica, fent les cèl·lules més vulnerables a l'estrès ER [129, 131]. En conseqüència, l'estrès ER indueix un augment precoç del metabolisme mitocondrial que depèn de manera crucial de l'acoblament dels orgànuls i la transferència de Ca2 més, que, millorant la bioenergètica cel·lular, estableix la base metabòlica per a l'adaptació a aquesta resposta [129, 132]. Com que l'envelliment és un dels principals factors que causa un augment de l'estrès ER i la disfunció mitocondrial, l'atenuació de l'estrès ER és propici per a l'anti-envelliment [128]. Per tant, s'ha informat que la biogènesi mitocondrial millorada s'associa amb una millora de l'eficiència de la cadena de transport d'electrons, que pot esdevenir un potencial enfocament terapèutic anti-envelliment per bloquejar l'acumulació d'espècies reactives d'oxigen i promoure la supervivència cel·lular mitjançant l'alleujament de l'estrès ER [133].
CONCLUSIONS
En conjunt, la plasticitat mitocondrial té un paper central en la regulació de l'activitat i les funcions de les cèl·lules mare. Les xarxes de senyalització intrínseques i extrínseques són responsables de la regulació dinàmica de la funció mitocondrial i de l'adaptació a senyals intrínsecs i extrínsecs per a les decisions últimes del destí cel·lular. La interacció i la diafonia entre els microambients envellits, l'estrès ER i la dinàmica mitocondrial inter i intracel·lular estan implicades en la progressió de l'envelliment de les cèl·lules mare i els teixits i òrgans funcionalment disminuïts. Investigacions més àmplies sobre l'envelliment de les cèl·lules mare associats a la comunicació mitocondria-ER i els canvis en els estats de la cromatina i la dinàmica mitocondrial dins del nínxol regeneratiu no només impulsaran el desenvolupament de nous objectius farmacèutics per a la curació de trastorns relacionats amb l'edat mitjançant l'orientació als mitocondris-ER- vies de senyalització associades, però també proporcionen noves idees sobre l'activació de cèl·lules mare mediada per mitocondris durant la regeneració dels teixits. La identificació de signatures moleculars mitocondrials específiques entre diferents cèl·lules mare derivades de la font pot avançar en la nostra comprensió de la biologia de les cèl·lules mare i donar llum a noves estratègies per a una longevitat saludable i millorar els resultats terapèutics de la teràpia cel·lular.

REFERÈNCIES
1. Cable J, Fuchs E, Weissman I, Jasper H, Glass D, Rando T, et al. Cèl·lules mare adultes i medicina regenerativa: informe del simposi. Ann. NY Acad. Ciència. 2020;1462:27.
2. Yamanaka S. Teràpia cel·lular basada en cèl·lules mare pluripotents: promesa i reptes. Cèl·lula mare cel·lular. 2020;27:523–31.
3. Adam RC, Yang H, Rockowitz S, Larsen SB, Nikolova M, Oristian DS, et al. Els factors pioners regeixen la dinàmica de súper potenciadors en la plasticitat de les cèl·lules mare i l'elecció del llinatge. Naturalesa. 2015;521:366–70.
4. Li L, Clevers H. Coexistencia de cèl·lules mare adultes quiescents i actives en mamífers. Ciència. 2010;327:542–5.
5. Visvader JE, Clevers H. Dissenys específics de teixits de jerarquies de cèl·lules mare. Nat. Biol cel·lular. 2016;18:349–55.
6. Bond AM, Ming GL, Song H. Cèl·lules mare neurals de mamífers adults i neurogènesi: cinc dècades després. Cèl·lula mare cel·lular. 2015;17:385–95.
7. Ransom RC, Carter AC, Salhotra A, Leavitt T, Marecic O, Murphy MP, et al. Les cèl·lules mare mecanoresponsives adquireixen el destí de la cresta neural en la regeneració de la mandíbula. Naturalesa. 2018;563:514–21.
8. Zheng M, Kim SK, Joe Y, Back SH, Cho HR, Kim HP, et al. La detecció de l'estrès del reticle endoplasmàtic mitjançant la proteïna quinasa similar a l'ARN del reticle endoplasmàtic quinasa promou la biogènesi adaptativa de l'ADN mitocondrial i la supervivència cel·lular mitjançant l'activitat hemo oxigenasa-1/monòxid de carboni. FASEB J. 2012;26:2558–68.
9. Feng J, Lu S, Ding Y, Zheng M, Wang X. L'homocisteïna activa les cèl·lules T millorant l'acoblament reticle endoplasmàtic-mitocondris i augmentant la respiració mitocondrial. Cèl·lula proteica. 2016;7:391–402.
10. Marchi S, Patergnani S, Pinton P. La connexió reticle endoplasmàtic-mitocondris: un toc, múltiples funcions. Biochim Biophys. Acta. 2014;1837:461–9.
11. Genovese I, Vezzani B, Danese A, Modesti L, Vitto VAM, Corazzi V, et al. Els mitocondris com a decisors del destí de les cèl·lules canceroses: des de vies de senyalització fins a estratègies terapèutiques. Calci cel·lular. 2020;92:102308.
12. Cheng JB, Sedgewick AJ, Finnegan AI, Harirchian P, Lee J, Kwon S, et al. Programació transcripcional d'epidermis humana normal i inflamada a resolució unicel·lular. Cell Rep. 2018;25:871–83.
13. Feng C, Chan WCW, Lam Y, Wang X, Chen P, Niu B, et al. Lgr5 i Col22a1 marquen les cèl·lules progenitores del llinatge cap als condròcits articulars juvenils. Stem Cell Rep. 2019;13:713–29.
14. Pallafacchina G, Francois S, Regnault B, Czarny B, Dive V, Cumano A, et al. Una cèl·lula mare específica del teixit adult al seu nínxol: una anàlisi de perfils gènics de cèl·lules satèl·lits musculars activades i quiescents in vivo. Res de cèl·lules mare. 2010;4:77–91.
15. Hussenet T, Dembele D, Martinet N, Vignaud JM, du Manoir S. S'activa un fenotip molecular de cèl·lules mare específiques del teixit adult a les cèl·lules mare del càncer epitelial i es correlaciona amb el resultat del pacient. Cicle cel·lular. 2010;9:321–7.
16. Liang R, Ghaffari S. Mitocondria i FOXO3 en l'homeòstasi de les cèl·lules mare, una finestra a la determinació del destí de les cèl·lules mare hematopoètiques. J. Bioenerg. Biomembre. 2017;49:343–6.
17. Baccin C, Al-Sabah J, Velten L, Helbling PM, Grunschlager F, HernandezMalmierca P, et al. La transcriptòmica unicel·lular i espacial combinada revela l'organització del nínxol molecular, cel·lular i espacial de la medul·la òssia. Nat. Biol cel·lular. 2020;22:38–48.
18. Finnegan A, Cho RJ, Luu A, Harirchian P, Lee J, Cheng JB, et al. La transcriptòmica unicel·lular revela la rotació espacial i temporal dels reguladors de diferenciació de queratinòcits. Front Genet. 2019;10:775.
19. Xu X, Duan S, Yi F, Ocampo A, Liu GH, Izpisua Belmonte JC. Regulació mitocondrial en cèl·lules mare pluripotents. Metab cel·lular. 2013;18:325–32.
20. Archer SL. Dinàmica mitocondrial: fissió i fusió mitocondrial en malalties humanes. N. Anglès. J. Med. 2013;369:2236–51.
21. Forni MF, Peloggia J, Trudeau K, Shirihai O, Kowaltowski AJ. El compromís de les cèl·lules mare mesenquimals murines amb la diferenciació està regulat per la dinàmica mitocondrial. Cèl·lules mare. 2016;34:743–55.
22. Lin W, Xu L, Pan Q, Lin S, Feng L, Wang B, et al. Les cèl·lules mare mesenquimàtiques que sobreexpressen Lgr5-augmenten la curació de fractures mitjançant la regulació de les vies de senyalització Wnt/ERK i la dinàmica mitocondrial. FASEB J. 2019;33:8565–77.
23. Liu X, Weaver D, Shirihai O, Hajnoczky G. Mitocondrial 'kiss-and-run': interacció entre la motilitat mitocondrial i la dinàmica de fusió-fisssió. EMBO J. 2009;28:3074–89.
24. Kasahara A, Cipolat S, Chen Y, Dorn GW, Scorrano L. La fusió mitocondrial dirigeix la diferenciació dels cardiomiòcits mitjançant la senyalització de calcineurina i Notch. Ciència. 2013;342:734–7.
25. Wang X, Su B, Siedlak SL, Moreira PI, Fujioka H, Wang Y, et al. La sobreproducció de beta amiloide provoca una dinàmica mitocondrial anormal mitjançant la modulació diferencial de les proteïnes de fissió/fusió mitocondrials. Proc. Natl Acad. Ciència. EUA. 2008;105:19318–23.
26. Walter J, Bolognin S, Antony PMA, Nickels SL, Poovathingal SK, Salamanca L, et al. Les cèl·lules mare neuronals dels pacients amb malaltia de Parkinson presenten una morfologia i funcionalitat mitocondrial aberrants. Stem Cell Rep. 2019;12:878–89.
27. Korobova F, Ramabhadran V, Higgs HN. Un pas depenent de l'actina en la fissió mitocondrial mediat per la formina INF2 associada a ER. Ciència. 2013;339:464–7.
28. Angelova PR, Barilani M, Lovejoy C, Dossena M, Vigano M, Seresini A, et al. La disfunció mitocondrial a les cèl·lules mare mesenquimals de Parkinson perjudica la diferenciació. Redox Biol. 2018;14:474–84.
29. Guo J, Ren R, Yao X, Ye Y, Sun K, Lin J, et al. PKM2 suprimeix l'osteogènesi i facilita l'adipogènesi regulant la senyalització de la beta-catenina i la fusió i fissió mitocondrial. Envelliment (Albany NY). 2020;12:3976–92.
30. Gojo S, Gojo N, Takeda Y, Mori T, Abe H, Kyo S, et al. Cardiovasculogènesi in vivo per injecció directa de cèl·lules mare mesenquimals adultes aïllades. Exp. Res cel·lular 2003;288:51–9.
31. Su J, Guo L, Wu C. Una interacció mecanoresponsiva PINCH-1-Notch2 regula la diferenciació del múscul llis de les cèl·lules mare mesenquimals placentàries humanes. Cèl·lules mare 2021;39:650–68.
32. Mirotsou M, Zhang Z, Deb A, Zhang L, Gnecchi M, Noiseux N, et al. La proteïna 2 relacionada amb el frizzled secretada (Sfrp2) és el factor paracrí clau alliberat per cèl·lules mare mesenquimals Akt que media la supervivència i la reparació del miocardi. Proc. Natl Acad. Ciència. EUA. 2007;104:1643–8.
33. Roefs MT, Sluijter JPG, Vader P. Proteïnes associades a vesícules extracel·lulars en la reparació de teixits. Tendències Cell Biol. 2020;30:990–1013.
34. Hou Y, Lin W, Li Y, Sun Y, Liu Y, Chen C, et al. Les cèl·lules mare mesenquimals diferenciades desosteogèniques acceleren la curació de fractures per mir-92b. J. Orthop. Trad. 2021;27:25–32.
35. Akiyama K, Chen C, Wang D, Xu X, Qu C, Yamaza T, et al. La immunoregulació induïda per cèl·lules mare mesenquimals implica apoptosi de cèl·lules T mediada per lligands FAS/FAS. Cèl·lula mare cel·lular. 2012;10:544–55.
36. Shi Y, Wang Y, Li Q, Liu K, Hou J, Shao C, et al. Mecanismes immunoreguladors de cèl·lules mare mesenquimals i estromals en malalties inflamatòries. Nat. Reverent Nephrol. 2018;14:493–507.
37. Acquistapace A, Bru T, Lesault PF, Figeac F, Coudert AE, le Coz O, et al. Les cèl·lules mare mesenquimals humanes reprogramen els cardiomiòcits adults cap a un estat semblant als progenitors mitjançant la fusió cel·lular parcial i la transferència de mitocondris. Cèl·lules mare. 2011;29:812–24.
38. Ahmad T, Mukherjee S, Pattnaik B, Kumar M, Singh S, Rehman R, et al. Miro1 regula el transport mitocondrial intercel·lular i millora l'eficàcia de rescat de cèl·lules mare mesenquimals. EMBO J. 2014;33:994–1010.
39. Paliwal S, Chaudhuri R, Agrawal A, Mohanty S. Habilitats regeneratives de les cèl·lules mare mesenquimals mitjançant transferència mitocondrial. J. Biomed. Ciència. 2018;25:31.
40. Luz-Crawford P, Hernandez J, Djouad F, Luque-Campos N, Caicedo A, CarrereKremer S, et al. La repressió de cèl·lules mare mesenquimals de les cèl·lules Th17 es desencadena per transferència mitocondrial. Res de cèl·lules mare. Allà. 2019;10:232.
41. Gao J, Qin A, Liu D, Ruan R, Wang Q, Yuan J, et al. El reticle endoplasmàtic media la transferència mitocondrial dins de la xarxa dendrítica dels osteòcits. Ciència. Adv. 2019;5:eaaw7215.
42. Xu LL, Liu YM, Sun YX, Wang B, Xiong YP, Lin WP, et al. La font del teixit determina els potencials de diferenciació de les cèl·lules mare mesenquimals: un estudi comparatiu de les cèl·lules mare mesenquimals humanes de la medul·la òssia i el teixit adipós. Res de cèl·lules mare. Allà. 2017;8:1–11.
43. Katsuda T, Ochiya T. Signatures moleculars de la reparació del teixit extracel·lular derivada de cèl·lules mare mesenquimals mediada per vesícules. Res de cèl·lules mare. Allà. 2015;6:212.
44. Wang ZG, He ZY, Liang S, Yang Q, Cheng P, Chen AM. Anàlisi proteòmica integral dels exosomes derivats de la medul·la òssia humana, el teixit adipós i les cèl·lules mare mesenquimals del cordó umbilical. Res de cèl·lules mare. Allà. 2020;11:511.
45. Wanet A, Caruso M, Domelevo Entfellner JB, Najar M, Fattaccioli A, Demazy C, et al. El factor de transcripció 7-com el 2-coactivador gamma del receptor activat pel proliferador de peroxisomes-1 eix alfa connecta la biogènesi mitocondrial i el canvi metabòlic amb el compromís de les cèl·lules mare amb la diferenciació hepàtica. Cèl·lules mare. 2017;35:2184–97.
46. Paliwal S, Chaudhuri R, Agrawal A, Mohanty S. Els MSC específics de teixit humà demostren capacitats de transferència de mitocondris diferencials que poden determinar les seves capacitats regeneratives. Res de cèl·lules mare. Allà. 2018;9:298.
47. Chiu RW, Chan LY, Lam NY, Tsui NB, Ng EK, Rainer TH, et al. Anàlisi quantitativa de l'ADN mitocondrial circulant al plasma. Clin. Chem. 2003;49:719–26.
48. Al Amir Dache Z, Otandault A, Tanos R, Pastor B, Meddeb R, Sanchez C, et al. La sang conté mitocòndries respiratòries lliures de cèl·lules circulants. FASEB J. 2020;34:3616–30.
49. Nombela-Arrieta C, Ritz J, Silberstein LE. La naturalesa esquiva i la funció de les cèl·lules mare mesenquimals. Nat. mossèn Mol. Biol cel·lular. 2011;12:126–31.
50. Parker DJ, Iyer A, Shah S, Moran A, Hjelmeland AB, Basu MK, et al. Un nou conjunt mitocondrial de ciclina E, regulat per Drp1, està relacionat amb la proliferació cel·lular depenent de la densitat cel·lular. J. Cell Sci. 2015;128:4171–82.
51. St John JC, Facucho-Oliveira J, Jiang Y, Kelly R, Salah R. Transmissió, replicació i herència de l'ADN mitocondrial: un viatge des del gàmeta a través de l'embrió fins a la descendència i les cèl·lules mare embrionàries. Brunzit. Reprod. Actualització. 2010;16:488–509.
52. Kelly RD, Rodda AE, Dickinson A, Mahmud A, Nefzger CM, Lee W, et al. Els haplotips d'ADN mitocondrial defineixen patrons d'expressió gènica en cèl·lules mare embrionàries pluripotents i diferenciadores. Cèl·lules mare. 2013;31:703–16.
53. Lin W, Xu L, Li G. Un nou protocol per a l'aïllament i el cultiu de cèl·lules progenitores multipotents de l'orina humana. J. Orthop. Trad. 2019;19:12–7.
54. Wilson A, Hodgson-Garms M, Frith JE, Genever P. Multiplicity of mesenquimal stromal cells: finding the right route to thetherapy. Front Immunol. 2019;10:1112.
55. Morita Y, Ema H, Nakauchi H. Heterogeneïtat i jerarquia dins del compartiment de cèl·lules mare hematopoètiques més primitiu. J. Exp. Med. 2010;207: 1173–82.
56. Ban-Ishihara R, Ishihara T, Sasaki N, Mihara K, Ishihara N. La dinàmica de l'estructura nucleoide regulada per la fissió mitocondrial contribueix a la reforma de les cristes i l'alliberament del citocrom c. Proc. Natl Acad. Ciència. EUA. 2013;110:11863–8.
57. Friedman JR, Lackner LL, West M, DiBenedetto JR, Nunnari J, Voeltz GK. ER, els túbuls marquen els llocs de divisió mitocondrial. Science 2011;334:358–62.

58. Lewis SC, Uchiyama LF, Nunnari J. Els contactes ER-mitocondris pareixen la síntesi d'ADNmt amb la divisió mitocondrial a les cèl·lules humanes. Ciència. 2016;353:aaf5549.
59. Gherghiceanu M, Popescu LM. Precursors de cardiomiòcits i telòcits al nínxol de cèl·lules mare epicàrdiques: imatges de microscopi electrònic. J. Cell Mol. Med. 2010;14:871–7.
60. Russell KC, Phinney DG, Lacey MR, Barrilleaux BL, Meyertholen KE, O'Connor KC. L'assaig in vitro d'alta capacitat per quantificar l'heterogeneïtat clonal en el potencial de trilinatge de les cèl·lules mare mesenquimals revela una complexa jerarquia de compromís de llinatge. Cèl·lules mare. 2010;28:788–98.
61. Godwin S, Ward D, Pedone E, Homer M, Fletcher AG, Marucci L. An extended model for culture-dependent heterogenous gene expression and proliferation dynamics in mouse embryonic stem cells. NPJ Syst. Biol. Appl. 2017;3:19.
62. Rennert RC, Januszyk M, Sorkin M, Rodrigues M, Maan ZN, Duscher D, et al. L'anàlisi transcripcional microfluídica unicel·lular identifica racionalment nous perfils de marcadors de superfície per millorar les teràpies basades en cèl·lules. Nat. Commun. 2016;7:11945.
63. Bigarella CL, Liang R, Ghaffari S. Cèl·lules mare i l'impacte de la senyalització ROS. Desenvolupament 2014;141:4206–18.
64. Zon LI. Control intrínsec i extrínsec de l'autorenovació de cèl·lules mare hematopoètiques. Nature 2008;453:306–13.
65. Lisowski P, Kannan P, Mlody B, Prigione A. Mitocondria i el control dinàmic de l'homeòstasi de les cèl·lules mare. EMBO Rep 2018;19:e45432. 66. Campello S, Scorrano L. Mitocondrial shape changes: orchestrating cell patophysiology. EMBO Rep. 2010;11:678–84.
67. Bahat A, Gross A. Plasticitat mitocondrial en la regulació del destí cel·lular. J. Biol. Chem. 2019;294:13852–63.
68. Maryanovich M, Zaltsman Y, Ruggiero A, Goldman A, Shachnai L, Zaidman SL, et al. Una via MTCH2 que reprimeix el metabolisme dels mitocondris regula el destí de les cèl·lules mare hematopoètiques. Nat. Commun. 2015;6:7901.
69. Anso E, Weinberg SE, Diebold LP, Thompson BJ, Malinge S, Schumacker PT, et al. La cadena respiratòria mitocondrial és essencial per a la funció de les cèl·lules mare hematopoètiques. Nat. Biol cel·lular. 2017;19:614–25.
70. Hinge A, He J, Bartram J, Javier J, Xu J, Fjellman E, et al. Els mitocondris segregats asimètricament proporcionen memòria cel·lular de la història replicativa de cèl·lules mare hematopoètiques i impulsen el desgast de HSC. Cèl·lula mare cel·lular. 2020;26:420–30 e6.
71. Chung JY, Steen JA, Schwarz TL. La desaparició del motor induïda per la fosforilació és necessària a la mitosi per a una correcta distribució i herència passiva dels mitocondris. Cell Rep. 2016;16:2142–55.
72. Katajisto P, Dohla J, Chaffer CL, Pentinmikko N, Marjanovic N, Iqbal S, et al. Cèl·lules mare. Es requereix una distribució asimètrica dels mitocondris envellits entre cèl·lules filles per a la mare. Ciència. 2015;348:340–3.
73. Yamashita YM, Mahowald AP, Perlin JR, Fuller MT. Herència asimètrica del centrosoma mare versus filla en la divisió de cèl·lules mare. Ciència. 2007;315:518–21.
74. Mohrin M, Shin J, Liu Y, Brown K, Luo H, Xi Y, et al. Envelliment de cèl·lules mare. Un punt de control metabòlic mediat per la UPR mitocondrial regula l'envelliment de les cèl·lules mare hematopoètiques. Ciència. 2015;347:1374–7.
75. Iwata R, Casimir P, Vanderhaeghen P. La dinàmica mitocondrial en cèl·lules postmitòtiques regula la neurogènesi. Ciència. 2020;369:858–62.
76. Ren L, Chen X, Chen X, Li J, Cheng B, Xia J. Dinàmica mitocondrial: fissió i fusió en la determinació del destí de les cèl·lules mare mesenquimals. Desenvolupament de cèl·lules frontals Biol. 2020;8:580070.
77. Agathocleous M, Love NK, Randlett O, Harris JJ, Liu J, Murray AJ, et al. Diferenciació metabòlica a la retina embrionària. Nat. Biol cel·lular. 2012;14:859–64.
78. Chen CT, Shih YRV, Kuo TK, Lee OK, Wei YH. Canvis coordinats en la biogènesi mitocondrial i els enzims antioxidants durant la diferenciació osteogènica de les cèl·lules mare mesenquimals humanes. Cèl·lules mare. 2008;26:960–8.
79. Chung S, Dzeja PP, Faustino RS, Perez-Terzic C, Behfar A, Terzic A. El metabolisme oxidatiu mitocondrial és necessari per a la diferenciació cardíaca de les cèl·lules mare. Nat. Clin. Practiqueu. Med. Cardiovascular. 2007;4:S60–S7.
80. Folmes CD, Dzeja PP, Nelson TJ, Terzic A. Metabolic plasticity in stem cell homeostasis and diferenciation. Cèl·lula mare cel·lular. 2012;11:596–606.
81. Mandal S, Lindgren AG, Srivastava AS, Clark AT, Banerjee U. La funció mitocondrial controla la proliferació i el potencial de diferenciació primerenca de les cèl·lules mare embrionàries. Cèl·lules mare. 2011;29:486–95.
82. Khacho M, Clark A, Svoboda DS, Azzi J, MacLaurin JG, Meghaizel C, et al. La dinàmica mitocondrial afecta la identitat de les cèl·lules mare i les decisions del destí mitjançant la regulació d'un programa transcripcional nuclear. Cèl·lula mare cel·lular. 2016;19:232–47.
83. Hoque A, Sivakumaran P, Bond ST, Ling NXY, Kong AM, Scott JW, et al. La inhibició de la proteïna de fissió mitocondrial Drp1 promou la diferenciació mesodèrmica cardíaca de les cèl·lules mare pluripotents humanes. Cell Death Discov. 2018;4:39.
84. Xu Y, Zhang Y, Garcia-Canaveras JC, Guo L, Kan M, Yu S, et al. L'autofàgia mediada per chaperones regula la pluripotència de les cèl·lules mare embrionàries. Ciència. 2020;369:397–403.
85. TeSlaa T, Chaikovsky AC, Lipchina I, Escobar SL, Hochedlinger K, Huang J, et al. L'alfa-cetoglutarat accelera la diferenciació inicial de les cèl·lules mare pluripotents humanes. Metab cel·lular. 2016;24:485–93.
86. Lu V, Dahan P, Ahsan FM, Patananan AN, Roy IJ, Torres A Jr, et al. El metabolisme mitocondrial i la glutamina són essencials per a la diferenciació del mesoderm de les cèl·lules mare pluripotents humanes. Res cel·lular 2019;29:596–8.
87. Schieke SM, Ma M, Cao L, McCoy JP Jr, Liu C, Hensel NF, et al. El metabolisme mitocondrial modula la diferenciació i la capacitat de formació de teratomes en cèl·lules mare embrionàries de ratolí. J. Biol. Chem. 2008;283:28506–12.
88. Ma MS, Kannan V, de Vries AE, Czepiel M, Wesseling EM, Balasubramaniyan V, et al. Caracterització i comparació d'osteoblasts derivats de cèl·lules mare embrionàries de ratolí i cèl·lules mare pluripotents induïdes. J. Bone Min. Metab. 2017;35:21–30.
89. Daw CC, Ramachandran K, Enslow BT, Maity S, Bursic B, Novello MJ, et al. El lactat provoca dinàmiques de Mg (2 plus) ER-mitocondrial per integrar el metabolisme cel·lular. Cèl·lula. 2020;183:474–89 e17.
90. Alt EU, Senst C, Murthy SN, Slakey DP, Dupin CL, Chaffin AE, et al. L'envelliment altera les propietats de les cèl·lules mare mesenquimals residents en els teixits. Res de cèl·lules mare. 2012;8:215–25.
91. Berger E, Rath E, Yuan D, Waldschmitt N, Khaloian S, Allgauer M, et al. La funció mitocondrial controla la tija i la proliferació de l'epiteli intestinal. Nat. Commun. 2016;7:13171.
92. Zong Z, Zhang X, Yang Z, Yuan W, Huang J, Lin W, et al. Les cèl·lules mare mesenquimals envellides rejovenides mitjançant el precondicionament gradual milloren l'artrosi induïda per la cirurgia en conills. Bone Jt. Res. 2021;10:10–21.
93. Chakkalakal JV, Jones KM, Basson MA, Brack AS. El nínxol envellit altera la quiescència de les cèl·lules mare musculars. Naturalesa. 2012;490:355–60.
94. Maryanovich M, Zahalka AH, Pierce H, Pinho S, Nakahara F, Asada N, et al. La degeneració del nervi adrenèrgic a la medul·la òssia provoca l'envelliment del nínxol de cèl·lules mare hematopoètiques. Nat. Med. 2018;24:782–91.
95. López-Otin C, Blasco MA, Partridge L, Serrano M, Kroemer G. The hallmarks of aging. Cèl·lula. 2013;53:1194–217.
96. Oh J, Lee YD, Wagers AJ. Envelliment de cèl·lules mare: mecanismes, reguladors i oportunitats terapèutiques. Nat. Med. 2014;20:870–80.
97. Baker N, Boyette LB, Tuan RS. Caracterització de les cèl·lules mare mesenquimals derivades de la medul·la òssia en l'envelliment. Bone 2015;70:37–47.
98. Chen C, Liu Y, Liu R, Ikenoue T, Guan KL, Zheng P. TSC-mTOR manté la quiescència i la funció de les cèl·lules mare hematopoètiques reprimint la biogènesi mitocondrial i les espècies reactives d'oxigen. J. Exp. Med. 2008;205: 2397–408.
99. Jaiswal S, Fontanillas P, Flannick J, Manning A, Grauman PV, Mar BG, et al. Hematopoiesi clonal relacionada amb l'edat associada a resultats adversos. N. Anglès. J. Med. 2014;371:2488–98.
100. Shyh-Chang N, Daley GQ, Cantley LC. Metabolisme de les cèl·lules mare en el desenvolupament i l'envelliment dels teixits. Desenvolupament 2013;140:2535–47.
101. Vannini N, Girotra M, Naveiras O, Nikitin G, Campos V, Giger S, et al. Especificació del destí de les cèl·lules mare hematopoètiques mitjançant la modulació de l'activitat mitocondrial. Nat. Commun. 2016;7:13125.
102. Zhang H, Ryu D, Wu Y, Gariani K, Wang X, Luan P, et al. La reposició de NAD(plus) millora la funció de les cèl·lules mare i mitocondrials i millora la vida útil dels ratolins. Ciència. 2016;352:1436–43.
103. Jin C, Li J, Green CD, Yu X, Tang X, Han D, et al. La histona desmetilasa UTX-1 regula la vida útil de C. elegan dirigint-se a la via de senyalització de la insulina/IGF-1. Metab cel·lular. 2011;14:161–72.
104. Brown K, Xie S, Qiu X, Mohrin M, Shin J, Liu Y, et al. SIRT3 reverteix la degeneració associada a l'envelliment. Cell Rep. 2013;3:319–27.
105. Ito K, Turcotte R, Cui J, Zimmerman SE, Pinho S, Mizoguchi T, et al. L'auto-renovació d'una població de cèl·lules mare hematopoètiques Tie2 purificada depèn de l'eliminació mitocondrial. Ciència. 2016;354:1156–60.
106. Chen Z, Amro EM, Becker F, Holzer M, Rasa SMM, Njeru SN, et al. La senyalització NF-kappaB mediada per cohesin limita l'autorenovació de les cèl·lules mare hematopoètiques en l'envelliment i la inflamació. J. Exp. Med. 2019;216:152–75.
107. Youm YH, Grant RW, McCabe LR, Albarado DC, Nguyen KY, Ravussin A, et al. L'inflammasoma canònic Nlrp3 enllaça la inflamació sistèmica de baix grau amb la disminució funcional de l'envelliment. Metab cel·lular. 2013;18:519–32.
108. Youm YH, Kanneganti TD, Vandanmagsar B, Zhu X, Ravussin A, Adijiang A, et al. L'inflamsoma Nlrp3 promou la desaparició del tímic i la immunosenescència relacionada amb l'edat. Cell Rep. 2012;1:56–68.
109. Luo H, Mu WC, Karki R, Chiang HH, Mohrin M, Shin JJ, et al. L'activació aberrant iniciada per l'estrès mitocondrial de l'inflamsoma NLRP3 regula el deteriorament funcional de l'envelliment de les cèl·lules mare hematopoietiques. Cell Rep. 2019;26:945–54 e4.
110. Yu WM, Liu X, Shen J, Jovanovic O, Pohl EE, Gerson SL, et al. La regulació metabòlica per part de la fosfatasa mitocondrial PTPMT1 és necessària per a la diferenciació de cèl·lules mare hematopoètiques. Cèl·lula mare cel·lular. 2013;12:62–74.
111. Tsang KY, Chan D, Cheslett D, Chan WC, So CL, Melhado IG, et al. L'estrès del reticle endoplasmàtic supervivent s'acobla a la diferenciació i funció alterades dels condròcits. PLoS Biol. 2007;5:e44.
112. Hetz C. La resposta proteica desplegada: controlant les decisions del destí cel·lular sota estrès ER i més enllà. Nat. mossèn Mol. Biol cel·lular. 2012;13:89–102.
113. Kourtis N, Tavernarakis N. Vies de resposta a l'estrès cel·lular i envelliment: relacions moleculars intricades. EMBO J. 2011;30:2520–31.
114. Haigis MC, Yankner BA. La resposta a l'estrès de l'envelliment. Mol. Cèl·lula. 2010;40:333–44.
115. Taormina G, Ferrante F, Vieni S, Grassi N, Russo A, Mirisola MG. Longevitat: lliçó dels organismes model. Genes (Basilea). 2019;10:518.
116. Liu L, Zhao M, Jin X, Ney G, Yang KB, Peng F, et al. La senyalització adaptativa de l'estrès del reticle endoplasmàtic mitjançant IRE1alpha-XBP1 preserva l'autorenovació de les cèl·lules mare hematopoètiques i pre-leucèmiques. Nat. Biol cel·lular. 2019;21:328–37.
117. Bravo R, Gutierrez T, Paredes F, Gatica D, Rodriguez AE, Pedrozo Z, et al. Reticle endoplasmàtic: l'estrès del RE regula la bioenergètica mitocondrial. Int. J. Biochem. Biol cel·lular. 2012;44:16–20.
118. Chan WCW, Tsang KY, Cheng YW, Ng VCW, Chik H, Tan ZJ, et al. L'activació de la resposta proteica desplegada als osteòcits provoca una hiperostosi consistent amb la displàsia craneodiafisària. Brunzit. Mol. Genet. 2017;26:4572–87.
119. Abdullahi A, Barayan D, Vinaik R, Diao L, Yu N, Jeschke MG. L'activació de la senyalització d'estrès d'ER augmenta la mortalitat després d'un trauma important. J. Cell Mol. Med. 2020;24:9764–73.
120. Ricci D, Marrocco I, Blumenthal D, Dibos M, Eletto D, Vargas J, et al. L'agrupament d'IRE1alpha depèn de la detecció de l'estrès ER, però no de la seva activitat RNasa. FASEB J. 2019;33:9811–27.
121. Bravo-Sagua R, Parra V, Ortiz-Sandoval C, Navarro-Marquez M, Rodriguez AE, Diaz-Valdivia N, et al. La caveolina-1 perjudica la remodelació mediada per PKA-DRP1-de la comunicació ERmitocondria durant la fase inicial de l'estrès ER. La mort cel·lular difereix. 2019;26:1195–212.
122. Hamasaki M, Furuta N, Matsuda A, Nezu A, Yamamoto A, Fujita N, et al. Els autofagosomes es formen als llocs de contacte ER-mitocondris. Naturalesa. 2013;495:389–93.
123. Cortez L, Sim V. El potencial terapèutic de les chaperones químiques en les malalties de plegament de proteïnes. Prion 2014;8:97–202.
124. Friedman JR, Webster BM, Mastronarde DN, Verhey KJ, Voeltz GK. La dinàmica de lliscament ER i els contactes ER-mitocondrials es produeixen als microtúbuls acetilats. J. Cell Biol. 2010;190:363–75.
125. English AM, Schuler MH, Xiao T, Kornmann B, Shaw JM, Hughes AL. Els contactes ERmitocondrials promouen la biogènesi del compartiment derivada dels mitocondris. J. Cell Biol. 2020;219:e202002144.
126. Goodrum JM, Lever AR, Coody TK, Gottschling DE, Hughes ALRsp5. i Mdm30 remodelen la xarxa mitocondrial en resposta a l'estrès vacúol induït per l'edat. Mol. Biol. Cèl·lula. 2019;30:2141–54.
127. Schuler MH, English AM, Campbell TJ, Shaw JM, Hughes AL. Els compartiments derivats dels mitocondris faciliten l'adaptació cel·lular a l'estrès dels aminoàcids. [Preimpressió]. 2020. Disponible a https://doi.org/10.1101/2020.03.13.991091.
128. Chen Q, Samidurai A, Thompson J, Hu Y, Das A, Willard B, et al. Disfunció mitocondrial mediada per l'estrès del reticle endoplasmàtic en cors envellits. Biochim. Biofísica. Acta Mol. Base Dis. 2020;1866:165899.
129. Bravo R, Vicencio JM, Parra V, Troncoso R, Munoz JP, Bui M, et al. L'augment de l'acoblament ERmitocondrial afavoreix la respiració mitocondrial i la bioenergètica durant les primeres fases de l'estrès ER. J. Cell Sci. 2011;124:2143–52.
130. Glancy B, Balaban RS. Paper del Ca2 plus mitocondrial en la regulació de l'energia cel·lular. Bioquímica 2012;51:2959–73.
131. Honrath B, Metz I, Bendridi N, Rieusset J, Culmsee C, Dolga AM. La proteïna 75 regulada per glucosa determina l'acoblament ER-mitocondrial i la sensibilitat a l'estrès oxidatiu a les cèl·lules neuronals. Cell Death Discov. 2017;3:17076.
132. Liu X, Hajnoczky G. Ca2 més -regulació dependent de la dinàmica mitocondrial pel complex Miro-Milton. Int. J. Biochem. Biol cel·lular. 2009;41:1972–6.
133. Knupp J, Arvan P, Chang A. L'augment de la respiració mitocondrial promou la supervivència de l'estrès del reticle endoplasmàtic. La mort cel·lular difereix. 2019;26:487–501.
134. Mironov SL, Ivannikov MV, Johansson M. [Ca2 plus ] I la senyalització entre els mitocondris i el reticle endoplasmàtic de les neurones està regulada per microtúbuls. Del porus de transició de la permeabilitat mitocondrial a l'alliberament de Ca2 més induït per Ca2 més. J. Biol. Chem. 2005;280:715–21.
135. Shan X, Roberts C, Lan Y, Percec I. L'edat altera l'estructura de la cromatina i l'expressió de proteïnes SUMO en condicions d'estrès en cèl·lules mare derivades de l'adipòs humà. Ciència. Rep 2018;8:11502.
136. Liu H, Huang B, Xue S, U KP, Tsang LL, Zhang X, et al. Conversació funcional entre la via mTORC1/p70S6K i l'organització de l'heterocromatina en la senescència induïda per l'estrès de les MSC. Res de cèl·lules mare. Allà. 2020;11:279.
137. Zhu D, Wu X, Zhou J, Li X, Huang X, Li J, et al. NuRD media la longevitat induïda per l'estrès mitocondrial mitjançant la remodelació de la cromatina en resposta al nivell d'acetil-CoA. Ciència. Adv. 2020;6:eabb2529.
138. Pietrangelo L, D'Incecco A, Ainbinder A, Michelucci A, Kern H, Dirksen RT, et al. Desacoblament de mitocondris depenent de l'edat de les unitats d'alliberament de Ca2 (plus) al múscul esquelètic. Oncotarget. 2015;6:35358–71.
139. Miyamoto K, Tajima Y, Yoshida K, Oikawa M, Azuma R, Allen GE, et al. La reprogramació cap a la totipotencia es veu molt facilitat pels efectes sinèrgics de les molècules petites. Biol. Obert. 2017;6:415–24.
140. Oliverio S, Beltran JSO, Occhigrossi L, Bordoni V, Agrati C, D'Eletto M, et al. La transglutaminasa tipus 2 està implicada en l'homeòstasi de les cèl·lules mare hematopoètiques. Bioquímica. 2020;85:1159–68.
141. Cakouros D, Gronthos S. El paisatge epigenètic canviant de les cèl·lules mare mesenquimals/estromals durant l'envelliment. Bone 2020;137:115440.
142. Betto RM, Diamante L, Perrera V, Audano M, Rapelli S, Lauria A, et al. Control metabòlic de la metilació de l'ADN en cèl·lules pluripotents ingènues. Nat. Genet. 2021;53:215–29.
143. Terasaki M, Chen LB, Fujiwara K. Els microtúbuls i el reticle endoplasmàtic són estructures molt interdependents. J. Cell Biol. 1986;103:1557–68.
144. Choi GE, Oh JY, Lee HJ, Chae CW, Kim JS, Jung YH, et al. Els contactes ER-mitocondris mediats per glucocorticoides redueixen el tràfic de receptors AMPA i de mitocondris a l'extrem cel·lular mitjançant la desestabilització dels microtúbuls. Mort cel·lular Dis. 2018;9:1137.
145. Liu X, Zhang Y, Ni M, Cao H, Signer RAJ, Li D, et al. Regulació de la biogènesi mitocondrial en l'eritropoesi mitjançant la traducció de proteïnes mediada per mTORC1-. Nat. Biol cel·lular. 2017;19:626–38.
APORTACIONS DE L'AUTOR
GL, XJ i WY-WL: conceptualització, disseny de marcs, edició de manuscrits i suport de finançament. WL, SC, YW i MW: recopilació de dades rellevants de literatura i recerca, escriptura de manuscrits i preparació de figures. Tots els autors van contribuir a la discussió substancial del contingut i l'aprovació de la versió final.
FINANÇAMENT
Aquest treball va ser finançat pel Hong Kong Government Research Grants Council, Collaborative Research Fund (C7030-18G a GL), General Research Fund (19-093- GRF, 14120118, 9054014, N_CityU102/). 15 i 14119115 a GL), Fons de la Comissió de Tecnologia d'Innovació de Hong Kong (PRP/050/19FX i ITS/448/18 a GL i XJ), Fundació de Ciències Naturals de Guang Dong (2018B030311065 a XJ), Fundació Nacional de Ciències Naturals de la Xina (NSFC núm. 31970815 a XJ), Hong Kong UGC/GRF (14165217 a XJ), Fons d'inici de la Universitat Xinesa de Hong Kong, RAE de Hong Kong (número de referència 4930991 a WY-WL). Aquest estudi també va comptar amb el suport dels fons de recerca del Programa Health@InnoHK llançat per la Comissió de Tecnologia d'Innovació de la RAE de Hong Kong, República Popular de la Xina i el Programa de Medicina de l'Esport i Tecnologia Regenerativa, Institut de Medicina Innovadora Lui Che Woo, Universitat Xinesa de Hong Kong.
DECLARACIÓ ÈTICA
No aplicable.
INTERESSOS COMPETENTS
Els autors no declaren interessos en competència.
INFORMACIÓ ADICIONAL
Correspondènciai les sol·licituds de materials s'han d'adreçar a WL o GL
Nota de l'editorSpringer Nature es manté neutral sobre les reclamacions jurisdiccionals en mapes publicats i afiliacions institucionals.
【Per a més informació:george.deng@wecistanche.com/WhatApp:86 13632399501】


