Reconfiguració del metabolisme de la glucosa i dels lípids induït pel receptor 17 acoblat a proteïnes G El silenciament permet la transició dels progenitors d'oligodendròcits a les cèl·lules mielinitzants Ⅱ
Jul 13, 2023
3. Resultats
3.1. El silenci de GPR17 en la diferenciació d'OPC va alterar significativament l'expressió dels gens implicats en el metabolisme dels lípids i la glucosa
Per destacar els processos biològics afectats significativament per l'expressió de GPR17 durant la diferenciació d'OL, vam interferir amb la seva expressió transfectant OPC de rata amb siRNAs de grup SMART específics per a GPR17 de rata. Després d'haver validat l'èxit de la derrota de GPR17 mitjançant qRT-PCR (figura S1), vam realitzar una anàlisi de microarrays de 30.584 transcripcions de rates en els OPC silenciats GPR17-o de control i vam analitzar els gens expressats de manera diferencial (DEG) mitjançant diferents eines bioinformàtiques. En primer lloc, Meta-Core ha estudiat els 640 DEG per realitzar una anàlisi d'enriquiment de la via i identificar els processos que es preveu que es veuran afectats de manera significativa. Aquesta anàlisi va suggerir una alteració de la senyalització mTOR, que ja s'ha demostrat que està vinculada a la funció GPR17 [37], i d'altres processos coneguts per ser rellevants per a la maduració de l'OPC, com ara "remodelació del citoesquelet"i"regulació del metabolisme dels lípids" (Taula 1).
 més
Feu clic aquí per conèixer Cistanche per al creixement ossi
Taula 1. S'ha utilitzat el programari MetaCore per realitzar una anàlisi d'enriquiment de la via dels DEG després del silenciament de GPR17. La taula mostra les vies més significatives resultants de l'anàlisi, el nombre de gens associats i els gens comuns inclosos en el conjunt de dades.

A continuació, es va utilitzar l'eina d'anàlisi de la ruta d'enginy (IPA) per realitzar una coincidència d'anàlisi, que identifica automàticament conjunts de dades IPA seleccionats amb similituds i diferències significatives en comparació amb un conjunt de dades de consulta. Aquesta anàlisi reforça l'enllaç previst entre l'expressió de GPR17 i el metabolisme dels lípids, demostrant que els canvis d'expressió de 38 gens del nostre conjunt de dades (taula S1) estan associats a la síntesi alterada d'àcids grassos (figura 1). Entre aquests, el silenciament de GPR17 va induir la regulació a l'alça de LXR (receptor hepàtic X alfa, NR1H3 a la figura 2 i la taula S1, un receptor nuclear que respon als oxisterols) i SREBP1 (proteïna d'unió a l'element regulador d'esterols 1, SREBF1 a la figura 1 i la taula S1), dos actors clau en la síntesi d'àcids grassos i colesterol. En el nostre conjunt de dades, també vam observar que diversos gens alterats, incloent PDH (piruvat deshidrogenasa), Ldha (lactat deshidrogenasa alfa) i Pdk1 (piruvat deshidrogenasa cinasa 1), estan relacionats amb el metabolisme de la glucosa i el cicle de Krebs, cosa que suggereix la possible implicació de el receptor GPR17 en la regulació d'aquests processos metabòlics. D'acord amb això, una anàlisi d'enriquiment basada en ontologia gènica (suite ToppGene) sobre els DEG va revelar una alteració del "procés metabòlic de l'àcid monocarboxílic" (GO:{{20}}032787, p- valor: 0,02), més enllà d'altres processos relacionats amb el desenvolupament del SNC i el metabolisme cel·lular, com ara "regulació del desenvolupament del sistema nerviós" (GO:0051960, valor p: 0,033) i "processos metabòlics d'esfingolípids" (GO:0006665, valor p : 0,043) (Figura 2; llista completa a la taula S2).
A nivell mundial, aquests canvis suggereixen que el silenciament de GPR17 pot actuar com a desencadenant per dirigir les cèl·lules a la mielinització, ajustant diversos gens implicats en la regulació transcripcional de l'homeòstasi de lípids i glucosa, així com en la utilització de colesterol i lípids per a la producció de mielina.

Figura 1. L'eina d'anàlisi de la via de l'enginy (IPA, Qiagen) es va utilitzar per analitzar el conjunt de dades i explorar les malalties i els processos biològics que es preveu que augmentaran o disminuiran en funció del patró de gens expressats de manera diferencial al conjunt de dades. A partir d'aquesta anàlisi, vam extrapolar l'esquema de la figura que inclou els gens relacionats amb la síntesi de lípids expressats de manera diferent al nostre conjunt de dades (valor p=9.67 × 10⁻⁴). Els noms complets d'aquests gens, juntament amb el canvi relatiu de plec (proporció log2) es mostren a la taula S1. En vermell, gens regulats a l'alça; en gens verds regulats a la baixa

Figura 2. La suite Toppgene s'ha utilitzat per a l'anàlisi d'enriquiment basat en GO als DEG. La imatge mostra alguns dels processos biològics significatius relacionats amb el sistema nerviós central i el metabolisme cel·lular potencialment alterat pel silenciament de GPR17. Les barres blaves indiquen el total de gens associats a cada terme; les barres vermelles indiquen els gens en comú amb el nostre conjunt de dades per a cada terme. La llista completa dels processos biològics resultants d'aquesta anàlisi i els valors p relatius es mostren a la taula S2.

3.2. Anàlisi metabolòmica durant la diferenciació OPC in vitro
Per avaluar la correlació entre l'expressió de GPR17 i l'activació de vies metabòliques específiques, es va realitzar una anàlisi metabolòmica d'OPC cultivades durant la seva maduració fisiològica. Els OPC es van mantenir en un medi de diferenciació i després es van lisar en quatre moments diferents (després de 0, 1, 3 i 5 dies de diferenciació, DID), que corresponen a diferents etapes de maduració de l'OL. Paral·lelament, per avaluar que en tots els experiments la maduració es va produir amb el temps esperat, es van cultivar OPC i es van tacar per a GPR17 i MBP. Els resultats van mostrar que el nombre de cèl·lules que expressaven GPR17-va arribar al seu màxim a 3 DID i després va tornar cap als nivells basals a 5 DID, mentre que el nombre de cèl·lules positives per MBP va augmentar progressivament durant la maduració (figura 3a), de manera coherent amb resultats anteriors [37]. L'avaluació metabolòmica OPC es va realitzar mitjançant cromatografia líquida-espectrometria de masses en tàndem (LC-MS/MS) tal com es va descriure anteriorment [38], centrant-se en els metabòlits energètics implicats en la glucòlisi, la via de la pentosa fosfat, el cicle de Krebs, l'oxidació d'àcids grassos, els seus cofactors. NADH, NAD plus, NADPH, NADP plus, ATP, ADP, AMP, aminoàcids i alguns dels seus derivats. Els perfils metabolòmics dels quatre punts analitzats es mostren a la figura 3b. El dia 0, els nivells de diversos metabòlits pertanyents i/o relacionats amb el cicle de Krebs (p. ex., succinat, malat, alfa-cetoglutarat, glutamat, aspartat, alanina i prolina) eren més alts, com s'esperava de les cèl·lules que arribaven. d'un estat altament proliferatiu (figura 3c). En etapes intermèdies (de DID 1 a 3), els OPC van mostrar una marcada regulació de les molècules implicades en la síntesi d'àcids grassos i colesterol. En conseqüència, vam observar un augment dels nivells d'acetil-CoA (figura 3c), que representa el precursor del colesterol i els àcids grassos i del malonil-CoA, un intermedi específic de la síntesi d'àcids grassos. A DID 5, vam observar un augment dels nivells de diverses acil-carnitines i aminoàcids en paral·lel a un augment significatiu de la glucosa intracel·lular lliure (figura 3c). També vam observar una disminució dels nivells d'AMP i ADP des del dia 0 fins al DID 5 i un augment transitori d'ATP entre DID 1 i DID 3. Aquestes dades indiquen que, des del dia 0 fins al DID 3, corresponent a la finestra temporal durant la qual GPR17 arriba a la seva màxima expressió, els OPC utilitzaven principalment glucosa i aminoàcids per mantenir la biosíntesi de colesterol i àcids grassos. A DID 5, tal com es posa de manifest per l'augment dels nivells d'acil-carnitina, els OPC probablement depenen de la utilització d'àcids grassos. En conjunt, aquestes dades indiquen que durant la diferenciació fisiològica els OPC reconnecten progressivament el seu metabolisme energètic per convertir-se en OL mielinizants madurs.
3.3. Anàlisi metabolòmica després del silenciament de GPR17 durant la maduració d'OPC in vitro
Per revelar la contribució del receptor GPR17 a impulsar els canvis metabòlics energètics que es produeixen durant la diferenciació cel·lular, vam realitzar metabolòmica en OPC silenciats GPR17-, en comparació amb els OPC de control que reben un ARN remenat. Primer vam examinar l'impacte del silenciament de GPR17 en la maduració d'OPC mitjançant la tinció d'immunofluorescència per a GPR17 i MBP. Com era d'esperar, després del silenciament del receptor, vam trobar una reducció de la tinció de GPR17, clarament visible a 3 DID. També vam observar un augment marcat del nombre de OL madurs positius per MBP tant a 3 DID (no mostrats) com a 5 DID (figura S2). Paral·lelament, es va realitzar una anàlisi detallada de qPCR en cinc punts (0, 1, 2, 3 i 5 dies de diferenciació, DID), revelant, en els OPC de control, un fort augment de l'expressió de GPR17 després d'1 DID, que assoleix nivells significatius a partir de 2 DID, un augment progressiu de l'expressió de MBP fins a 5 DID i una disminució significativa del marcador precoç NG2 (figura 4a). Per contra, després del silenciament de GPR17 (figura 4b), l'ARNm de GPR17 va assolir nivells més baixos a DID1 i després es va mantenir establement baix, l'expressió de MBP va augmentar encara més i NG2 va disminuir encara més. A la figura 4c es mostra una comparació directa de l'expressió NG2 i MBP en GPR17-silenciats versus OPC de control en cada moment. En conjunt, aquests resultats suggereixen que, en aquestes condicions experimentals, el silenciament de GPR17 als OPC va accelerar el seu procés de diferenciació. A continuació, la metabolòmica OPC es va realitzar mitjançant LC-MS/MS en els cinc punts de temps seleccionats. La comparació de les dades metabolòmiques obtingudes a partir d'OPC17-silenciades i de control de GPR en cada moment ens va permetre identificar els metabòlits que es veuen afectats significativament pel silenciament de GPR17.
Figura 3. (a) El gràfic mostra els canvis en el percentatge de cèl·lules GPR17 plus i MBP plus durant la diferenciació. n=3 per grup; ANOVA unidireccional amb la prova de Tukey. * p < 0.05, ** p < 0.01) (b) El mapa de calor mostra l'abundància de metabòlits en cada mostra aturada a 0, 1 , 3 o 5 DID. L'abundància dels metabòlits analitzats està representada per una escala cromàtica que va des del blau fosc (abundància molt baixa) fins al marró fosc (abundància molt alta). n=4–5 per grup. ( c ) Metabòlits amb una abundància significativament diferent entre les condicions (0, 1, 3 i 5 dies de diferenciació, DID; ANOVA unidireccional amb prova LSD de Fisher).
A DID 1 (figura 5a), no vam trobar canvis significatius. A DID 2 (figura 5b), vam trobar un augment significatiu d'alguns metabòlits del cicle de Krebs (malat, citrat de fumarat), un augment modest de carnitina lliure (CO), acetil-carnitina (C2), propionil-carnitina (C3: 0), butiril-carnitina (C4:0), valeril-carnitina (C5:{0), hexadecanoil-carnitina (C16:{0i una reducció significativa de la glucosa , lactat, creatina i ornitina. La reducció d'oliactat i creatina i l'augment de propionil-carnitina (C3) també es va observar a DID3 (Figura 5c) A DID 5 (Figura 5d), encara vam trobar un augment de carnitina lliure (Figura 5c). CO), acetilcarnitina (C2), propionil-carnitina (C3:0), butiril-carnitina (C4:{{30}}), valeril-carnitina (C5:0 )tetradecanoil-carnitina (C14:0), hexadecanoil-carnitina (C16:{0), octadecanoil-carnitina C18:0), octadecenoil-carnitina (C18:1), de manera similar al que es va observar originalment en més cèl·lules diferenciades (vegeu la figura 3), un augment de dihidroxiacetona-3-fosfat/gliceraldehid3-fosfat (DHAP/GAP), fumarat i citrat, i una disminució de l'acetil-CoA, Met-SOcreatina, taurina i carnosina.

Figura 4. Efecte del silenciament de GPR17 sobre la maduració de l'OPC. Els nivells d'expressió de GPR17 (verd), NG2blue) i MBP (vermell) es van avaluar mitjançant PCR en temps real durant la diferenciació en condicions de control (cèl·lules transfectades amb ARN revolt i després del silenciament de GPR17 (b) i normalitzada versus expressió a T{{{ 6}} (establert a 0). n=6 per cada punt temporal. ANOVA unidireccional amb les proves de comparacions múltiples de Tukey (a): ** p < {{1{0} }.001 vs. DID 0-2-3-5, @ p < 0.05 vs. DID 3-5; ## p < 0.01 vs. dia 0; SSS p < {{3{0}}.001 vs. DID{ {21}}; (b): *** p < 0.001 contra DID 0-2-3-5, @@@ p < 0 .001 enfront del dia 0, # p < 0,05, ### p < 0,001 enfront del dia 0.S p < 0,05, SS p < 0,01, SSS p < 0,001 V. DID 5. (C) L'expressió NG2 i MBP als OPCs de control GPR17-silenciats (establert a 0) en cada moment. El canvi de plec (FC) s'ha informat com a LOG, (FC). Una prova t de mostra, * p < 0, 05, * p < 0, 01; *** p < 0, 001 vs. DID relatiu en OPC de control.

Figura 5. Canvis metabolòmics induïts pel silenciament de GPR17 en OPC. ( a – d ) L'abundància de cada metabòlit després del silenciament de GPR17 s'ha normalitzat a la de la mostra de control relativa. Els canvis de plec resultants es van utilitzar per generar una gràfica de volcà per a cada punt temporal (1, 2, 3, 5 dies de diferenciació). Els punts sobre la línia horitzontal de punts representen els metabòlits que han mostrat un canvi estadísticament significatiu (LSD de Fisher corregit per FDR; p.adj <0.1). En verd, metabòlits amb menor expressió, en vermell, els de major expressió, després del silenciament de GPR17. n=7–9 per cada grup. DID: dies en diferenciació.
3.4. GPR17 modula l'alliberament de lactat durant la maduració d'OPC
A partir dels resultats de metabolòmica descrits anteriorment, es va trobar que el silenciament de GPR17 redueix els nivells intracel·lulars de lactat. Per avaluar si aquesta reducció reflecteix una disminució general del metabolisme del lactat o un augment de l'alliberament d'aquest metabòlit, vam mesurar els seus nivells en lisats cel·lulars i en els mitjans corresponents en diferents moments. Com es mostra a la figura 6, en condicions de control, el lactat intracel·lular va assolir l'abundància més alta a DID 2 (figura 6a) (quan l'expressió del receptor GPR17 també és màxima) i després es va reduir quan les cèl·lules es van madurar. En canvi, després del silenciament de GPR17, es va abolir l'augment del lactat intracel·lular i els seus nivells van disminuir encara més cap a la diferenciació. De fet, una comparació dels nivells de lactat a les OPC silenciades GPR17- versus les OPC de control en cada moment va destacar una reducció dels seus nivells a DID 2 i 3 (figura 6b). El lactat extracel·lular va seguir una cinètica diferent, mostrant una reducció significativa en comparació amb el DID 1 a DID 2-3-5 en condicions de control, mentre que en els OPC silenciats GPR17- es va mantenir establement més alt i després va disminuir significativament a DID 5 (figura 6c). ). Tanmateix, quan es comparen els nivells de lactat en els diferents moments entre les dues condicions experimentals, el silenciament de GPR17 va dificultar la reducció fisiològica,augment de la presència de lactatal medi a DID 2 i 3 (figura 6d),suggereix un augment de l'alliberament.
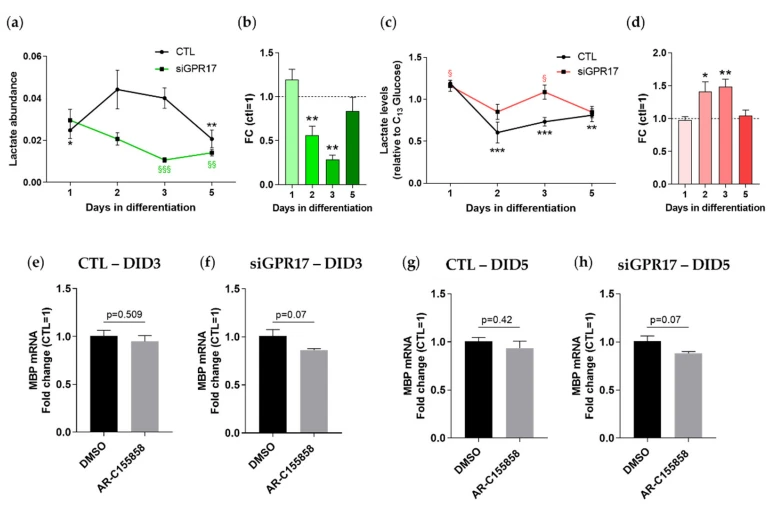
Figura 6. El silenciament de GPR17 en OPC altera el metabolisme del lactat. ( a ) Abundància de lactat durant la maduració de l'OPC en condicions de control (línia verda) i després del silenciament de GPR17 (línia taronja). n=7–9 per grup. ANOVA unidireccional amb la prova de comparacions múltiples de Tukey. * p < 0.05, ** p < 0.01 vs. DID2 CTL; §§ p < 0.01, §§§ p < {{30}}.001 vs. DID1 siGPR17 (b ) Els nivells de lactat després del silenciament de GPR17 es van normalitzar en comparació amb mostres de control (establert a 1) en cada moment (n=7-9). ** p <0,01; una prova t de mostra. Els mitjans condicionats de GPR17-silenciats i els OPC de control es van recollir del mateix cultiu utilitzat per a l'anàlisi metabolòmica. Els nivells de lactat als mitjans es van avaluar mitjançant LC-MS/MS. ( c ) L'abundància de lactat a l'espai extracel·lular durant la maduració de l'OPC en condicions de control (línia verda) i després del silenciament de GPR17 (línia taronja). ANOVA unidireccional amb la prova de comparacions múltiples de Tukey. ** p < 0,01, *** p < 0,001 enfront de DID1 CTL; § p < 0,05 vs. DID5 siGPR17. ( d ) Els nivells de lactat extracel·lular després del silenciament de GPR17 es van normalitzar versus mostres de control (establert a 1) en cada moment. * p <0,05; ** p <0,01; una prova t de mostra. S'ha avaluat l'efecte de la inhibició de MCT1 en els OPC control (e, g) i GPR17-silenciats (f,h) mitjançant l'anàlisi de l'expressió de MBP, en mostres tractades amb inhibidors versus controls relatius (tractats amb vehicles) , als 3 i 5 dies de diferenciació. n=6 per grup.

Un dels mecanismes pel qualEls OPC poden alliberar lactatés a través del transportador de monocarboxilats MCT1. A més, estudis recents van informar que els propis OPC poden adquirir lactat extracel·lular mitjançant receptors MCT promovent el seu cicle cel·lular i la seva diferenciació [39]. Així, ens vam preguntar si l'augment de l'alliberament de lactat induït pel silenciament de GPR17 podria estar mediat per MCT1 i si això pot ser parcialment responsable de l'efecte observat sobre la maduració de l'OPC en les mateixes condicions (figura 4). Amb aquest objectiu, vam tractar OPC amb AR-C155858, un inhibidor selectiu de MCT1, durant la diferenciació normal i després del silenciament de GPR17. Com era d'esperar, l'alliberament de lactat es va inhibir amb èxit en ambdues condicions (figura S3). L'efecte de la inhibició de MCT1 sobre la maduració de l'OPC en les diferents condicions experimentals es va avaluar mitjançant l'anàlisi dels nivells d'expressió de MBP. Només s'ha trobat una reducció modesta de l'expressió gènica de MBP, propera a la significació estadística (p=0.07), en mostres transfectades amb siRNA específic per a GPR17 (figura 6e-h); tanmateix, no va sorgir cap variació significativa en les mostres transfectades amb ARN de control (siNEG). Aquests resultats suggereixen que l'augment del lactat extracel·lular mediat per la baixada de GPR17 afavoreix la maduració dels OPC; tanmateix, el petit grau de reducció de la MBP indica que aquest metabòlit no és l'únic factor implicat en el procés.
3.5. Anàlisi lipidòmica després del silenciament de GPR17 durant la maduració OPC
Els resultats de l'anàlisi transcriptòmica després del silenciament de GPR17 també van posar de manifest un potencial vincle entre la seva funció i les vies sintètiques dels lípids i el colesterol, que són els components principals de la mielina. Per investigar més el paper de GPR17 en el metabolisme dels lípids, vam aplicar LC-MS/MS a l'anàlisi lipidòmica d'OPC silenciats amb GPR17- després de 2, 3 i 5 dies de diferenciació, en comparació amb el dia 0. La llista dels lípids analitzats, els canvis de plec relatius i els valors p es mostren a la taula S4. Les dues classes de lípids més abundants en els grups experimentals eren els àcids grassos i la família de diacil-fosfatidilcolina (PCaa). Durant la diferenciació dels OPC de control, no vam trobar cap canvi significatiu en l'abundància de cap classe de lípids. En canvi, els OPC17-silenciats per GPR van mostrar una tendència cap a una abundància alterada d'àcids grassos lliures, ceramides, acil-alquil-fosfatidilcolina (PCae) i fosfatidilinositol (PI) en comparació amb els OPC de control, especialment a DID 3 i 5, però només la diacil-fosfatidiletanolamina (PEaa) i l'esfingomielina (SM) van mostrar un canvi estadísticament significatiu (figura 7).

Figura 7. Canvis en l'abundància de classes lipídiques induïts pel silenciament de GPR17 durant la diferenciació OPC. S'informa de l'abundància de cada classe de lípids en condicions de control en diferents moments (a) Es va analitzar la cinètica de cada classe de lípids després del silenciament de GPR17: (b) àcids grassos, (C) ceramides (d) LysoPC (lisofosfatidil-colines), (e) LysoPE (lisofosfatidiletanolamines), (f) PCaa (diacil-fosfatidil-colines), (g) PCae (acil-alquil-fosfatidil-colines), (h) PEaa (di-acilfosfatidil-etanolamines), (i) PEae (acil-alquil-fosfatidil-etanolamines), (i) PI (fosfatidilinositols), (k) PS (fosfatidil-serines), (D SM (esfingomielines). n=5 per a cada grup. Cinètica: bidireccional ANOVA seguit de la prova de comparació múltiple de Tukey. siGPR17: ANOVA bidireccional seguit de la prova de comparació múltiple de Sidak. * p.adi < 0.05, ** p.adi < 0,01.
La comparació de les dades lipidòmiques obtingudes de GPR17-silenciades i controls en cada moment ens va permetre identificar els lípids que es van veure afectats significativament pel silenciament de GPR17. Després de 2 DID, no es van trobar canvis significatius (dades no mostrades). Després de 3 DID, la diacilfosfatidilcolina (PCaa) C40: 4 era menys abundant i la diacil-fosfatidiletanolaminaPEaa) C34: 3 era més abundant en els OPC silenciats GPR 17- (figura 8a). Després de 5 dies de diferenciació, el silenciament de GPR17 va provocar diversos canvis en l'abundància de lípids: reducció de diversos diacil-PC i diacil-PE i un augment concomitant de diversos plasmalògens (acil-alquil-PC) juntament amb esfingomielina (SM) C18: 1 i SM. (OH) C16:1 (figura 8b). Aquestes dades indiquen que la baixada de GPR17 altera el perfil lipídic del component principal de la mielina com PC i PE.

Figura 8.Canvis lipidòmics induïts pel silenciament de GPR17 en OPC. ( a, b ) L'abundància de cada lípid després del silenciament de GPR17 s'ha normalitzat a la de la mostra de control relativa. Els canvis de plec resultants es van utilitzar per generar una gràfica de volcà per a cada punt temporal (3, 5 dies de diferenciació). Els punts sobre la línia horitzontal de punts representen els metabòlits que han mostrat un canvi estadísticament significatiu (LSD de Fisher corregit per FDR; p.adj <0.1). En verd, lípids amb menor expressió, en vermell, els de major expressió, després del silenciament de GPR17. n=5 per grup.
Demana més:
Correu electrònic:wallence.suen@wecistanche.com
Whatsapp/Tel: més 86 15292862950
BOTIGA:
https://www.xjcistanche.com/cistanche-shop