Absència d'APOL1 als túbuls proximals dels ronyons humans normals i als ronyons proteïnúrics de ratolí transgènic APOL1
Mar 15, 2022
per a més informació:ali.ma@wecistanche.com
Natalya A. Benedicció1, Zhenzhen Wu2, Sethu M. Madhavan3, Jonathan W. Choy4, Michelle Chen4, Myung K. Shin4, Maarten HoekID5, John R. Sedor2,6,7, John F. O'Toole2,6,Leslie A. BruggemanID2,6*
1 Rammelkamp Center for Education and Research, MetroHealth Medical Center, Case Western ReserveUniversity School of Medicine, Cleveland, OH, Estats Units d'Amèrica, 2 Department of Inflammation & Immunity, Cleveland Clinic, Case Western Reserve University School of Medicine, Cleveland, OH, Estats Units of America, 3 Department of Medicine, Ohio State University, Columbus, OH, Estats Units d'Amèrica, 4 Merck & Company, Inc., Kenilworth, NJ, Estats Units d'Amèrica, 5 Maze Therapeutics, SouthSan Francisco, CA, Estats Units d'Amèrica , 6 Departament de Nefrologia, Cleveland Clinic, Case WesternReserve University School of Medicine, Cleveland, OH, Estats Units d'Amèrica, 7 Departament de Fisiologia i Biofísica, Case Western Reserve University School of Medicine, Cleveland, OH, Estats Units d'Amèrica.
Resum
El mecanisme de la patogènesi associat amb els polimorfismes APOL1 i el risc de malaltia renal crònica no diabètica (ERC) no s'entén del tot. Estudis previs han minimitzat el paper causal de la proteïna APOL1 circulant, per tant, els esforços per comprendreronyóla patogènesi s'ha centrat en l'APOL1 expressat a les cèl·lules renals. Delronyócèl·lules informades a expressAPOL1, thetúbul proximalels patrons d'expressió són inconsistents en els informes publicats i si APOL1 és sintetitzat pertúbul proximalo possiblement la proteïna APOL1 a la sang es filtra i es reabsorbeix pel túbul proximal encara no està clara. Mitjançant mètodes in situ tant de proteïnes com d'ARNm, es va examinar el patró d'expressió renal d'APOL1 en ratolins transgènics amb cromosomes artificials de bacteris humans i APOL1 amb i sense proteïnúria. La proteïna APOL1 i l'ARNm es van detectar en podòcits i cèl·lules endotelials, però no en epitelis tubulars. En el context de la proteinúria, la proteïna plasmàtica APOL1 no semblava filtrada ni reabsorbida per latúbul proximal. Un examen paral·lel d'anticossos comercials utilitzats en estudis anteriors suggereix que els informes originals d'APOL1 en túbuls proximals probablement reflecteixen la no especificitat dels anticossos. Com a tal, l'expressió d'APOL1 en podòcits i endotelis hauria de seguir sent el focus d'estudis mecanicistes en APOL1-mediadaronyómalalties.

Introducció
Els polimorfismes del gen APOL1 aporten un risc significatiu per a diverses formes de crònica no diabèticaronyómalaltia (ERC) [1–3]. Aquest risc sorgeix d'una combinació d'herència recessiva dels al·lels variant APOL1 més l'exposició a un factor d'estrès ambiental. La funció patògena de les variants de l'APOL1 i com interactuen amb l'estrès ambiental per provocar la CKD no s'entenen completament. Tot i que APOL1 està constitutivament present a la circulació, estudis previs han minimitzat el paper causal de la proteïna APOL1 circulant [4–7] i els esforços per comprendreronyóLa patogènesi s'ha centrat en l'APOL1 expressat a les cèl·lules renals. El patró d'expressió renal d'APOL1 no està clar amb discrepàncies publicades entre la immunohistoquímica i els resultats d'hibridació in situ de l'ARNm, sobretot l'abundant proteïna APOL1 observada a l'epiteli del túbul proximal [8–10]. Com que APOL1 és abundant en sang, no està clar si APOL1 es filtra, especialment en el context de la proteinúria, que podria donar lloc a la reabsorció de la proteïna APOL1 per part deltúbul proximal. L'aparició d'APOL1 al túbul proximal, ja sigui per expressió gènica o per reabsorció del filtrat, indicaria un paper potencialment important deltúbul proximalen la patogènesi d'ERC1-associada a APOL.
L'APOL1 en circulació s'uneix a una partícula HDL3 de 500 kDa, coneguda com a factor tripanolític 1, un complex IgM pobre en lípids de 1000 kDa, conegut com a factor tripanolític 2, i possiblement altres complexos d'alt nivell molecular i pobres en lípids associats amb el complement. factors [7, 11–13]. Les proteïnes produïdes pels dos al·lels variants APOL1 associats a CKD, G1 i G2, s'uneixen als factors tripanolítics d'alt pes molecular similars a l'al·lel comú G0 [14]. Tot i que la proteïna APOL1 (42,5 kDa) és prou petita per passar el límit de restricció de mida de la barrera de filtració glomerular, no se sap que circuli independentment d'aquests complexos d'alt pes molecular [15]. No obstant això, les lipoproteïnes i altres components dels HDL es poden filtrar [16] i, en el context de la proteinúria, les proteïnes de pes molecular més grans normalment restringides per la barrera de filtració poden aparèixer infiltrades. No està clar si els complexos que contenen APOL1 o APOL1-es poden filtrar en el context de la proteinúria.
Per resoldre aquests problemes, vam examinar tant l'expressió del gen APOL1 com de la proteïna en humansronyóteixit i ronyons de models de ratolins transgènics humanitzats que recreen l'expressió APOL1 humana nativa. Per a aquests estudis, vam validar anticossos comercials anti-APOL1 per a l'especificitat que podria haver contribuït a discrepàncies prèvies en els patrons d'expressió renal. A més, es van fer models de ratolí transgènic APOL1proteïnúricmitjançant l'entrecreuament amb un model de nefropatia associada al VIH (HIVAN), una ERC fortament associada amb el transport d'al·lels de risc APOL1, per determinar si la proteinúria canviaria l'aparença de la proteïna APOL1 a l'epiteli tubular.
Feu clic a orgànicCistanche per a la malaltia renal crònica
Materials i mètodes
Models de teixit humà i ratolí
Humà fixat en formalina i incrustat en parafinaronyóEl teixit (n {{0}}) i el fetge (n=3) dels marges normals de les reseccions de càncer es van obtenir del Biorepositori del Cleveland Clinic Lerner ResearchInstitute. S'han descrit prèviament tres línies de ratolí transgènics que expressen un fragment genòmic humà de 47 kb en un cromosoma artificial bacterià (BAC) que abasta les regions promotores i codificants del gen APOL1 humà per a cada al·lel G0, G1 o G2 [17, 18]. Cadascuna de les línies transgèniques BAC-APOL1 va ser de 10 generacions retrocreuades a FVB/Nj, un fons genètic susceptible a HIVAN. El model HIVAN de ratolí utilitzat per induir la proteinúria va ser el congènic Tg26 HIVAN4 [19] que desenvolupa proteinúria i glomeruloesclerosi segmentària focal progressiva com el model Tg26 parental (JacksonLaboratory #22354), però la progressió de la malaltia és més lenta. Per a tots els estudis, la malaltia renal es va controlar setmanalment després del deslletament mitjançant la mesura de la proteinúria (és a dir, la quantitat de proteïna en l'orina evacuada espontàniament) mitjançant anàlisi d'orina mitjançant tires reactivas de diagnòstic (Uristix, Siemens Healthcare). El punt final humà aprovat per la IACUC per a la malaltia renal en aquest model era la proteïnúria que arribava a 4 més a la tira reactiva. Cap animal va arribar a aquest punt final humà abans del punt final de l'estudi predeterminat, ja que aquest estudi va requerir una etapa primerenca de disfunció renal (proteinúria a la tira reactiva de 2 més a 3 més) com a funcionament.ronyonsencara es necessitaven capacitats de filtració i reabsorció. Tots els animals van mantenir un pes normal i van mostrar nivells de preparació i activitat típics, i no van patir dolor ni angoixa durant l'estudi. Tots els animals van ser controlats dues vegades per setmana per tècnics veterinaris no associats amb aquest estudi per a la salut i el benestar generals, i cap animal va requerir analgèsics o altres cures de suport. Cada línia de ratolins transgènics BAC-APOL1 es va creuar amb el model de ratolí HIVAN4 i es va sacrificar als 8 anys. 10 setmanes d'edat quan la seva malaltia renal va progressar fins a nivells de proteïnúria de 2 més mitjançant tira reactiva d'orina (G0 n=15, G1 n=11, G2 n=9). Es van realitzar recollides terminals d'orina, sang i teixits sota anestèsia profunda d'isoflurà seguida immediatament (mentre encara estava sota anestèsia) per l'eutanàsia mitjançant la luxació cervical. L'albuminuria es va avaluar mitjançant electroforesi en gel de poliacrilamida d'1 ul d'orina, seguida de tinció de Coomassiestaining. La Cleveland Clinic IRB (IRB-06-050) va revisar i aprovar l'ús de teixit humà. Es va renunciar al consentiment informat perquè el teixit es va considerar descartat i no es van recollir dades identificables. Tots els estudis amb animals van ser revisats i aprovats pels Comitès Institucionals de Cura i Ús d'Animals de la Cleveland Clinic i Case Western ReserveUniversity (IACUC-2430).
Immunofluorescència tisular
Fixat en formalina, incrustat en parafinaronyóles seccions de teixit es van sotmetre a la recuperació d'antigènere tal com es va descriure anteriorment [8]. Els anticossos utilitzats per examinar l'expressió APOL1 en aquest article van ser un conill anti-APOL1 humà (Sigma, HPA018885, lot E105260, dilució 1:400). També es van avaluar nombrosos lots d'aquest policlonal de conill Sigma a més d'altres anticossos monoclonals comercials i es resumeixen els resultats. a la taula suplementària 1A 1C i a la figura suplementària 1 a les dades S1. Cal destacar que molts d'aquests lots d'anticossos policlonals s'han esgotat i ja no estan disponibles a Sigma. Altres anticossos primaris inclouen conill anti-ratolí APOA1 (ThermoFisher, dilució 1:500), cabra anti-ratolí CD31 (R&D Systems, dilució 1:200), conillet d'índies anti-nefrina (USB, 1:200) i ratolí anti GLEPP1 ( regal de Roger Wiggins, 1:50). Es va utilitzar la lectina Lotus tetragonolobus marcada amb FITC (VectorLabs) per etiquetartúbul proximalcèl·lules tal com es va descriure anteriorment [8]. Per provar anticossos comercials contra APOL1 humà, els teixits renals es van fixar mitjançant una varietat de mètodes i es van incrustar en parafina per a la immunohistoquímica mitjançant diversos mètodes de recuperació d'antigen. Els detalls de cadascun d'aquests mètodes de processament es proporcionen a la secció Mètodes detallats suplementaris a les dades S1.
Expressió del gen i proteïna APOL1
La concentració de proteïna APOL1 en plasma es va determinar mitjançant l'immunoassaig d'electroquimioluminescència Meso Scale Discovery tal com es va descriure anteriorment [5]. La concentració es va determinar en relació amb una solució de lipoproteïna humana d'alta densitat calibrada per cromatografia líquida i espectrometria de masses. Els nivells sèrics de proteïnes APOL1 i APOA1 es van comparar mitjançant Westernblotting tal com es va descriure anteriorment [20].
Hibridació in situ d'ARNm
L'expressió del gen APOL1 es va examinar en ratolí i humàronyói teixit hepàtic mitjançant hibridació in situ d'ARNm. El kit manual d'hibridació in situ RNAScope (ACDBio) es va utilitzar per a teixits incrustats en parafina fixats en formalina seguint les instruccions del kit per a la detecció de sonda simple o doble. Les sondes incloïen APOL1 humana (número de catàleg 439871), nefrina murina (Nphs1, número de catàleg 433571) i CD31 murina (Pecam1, número de catàleg 316721). Els pretractaments van ser 15 minuts d'ebullició i 30-minuts de digestió de proteases. El senyal d'hibridació in situ apareix com a punts; un punt per deu cel·les és el fons esperat.
Resultats
Es van examinar diversos anticossos comercials anti-APOL1 humà (taula suplementària 1A a les dades S1) per determinar l'especificitat de l'APOL1 humà mitjançant extractes de teixit o proteïnes d'humà i ratolí.ronyonsi cèl·lules. Com que els ratolins no tenen un ortòleg de l'APOL1 humà, les cèl·lules i els teixits murins no haurien de ser immunoreactius als anticossos contra l'APOL1 humà. En Western blotting, la majoria d'anticossos monoclonals i policlonals comercials van poder detectar APOL1, tot i que diversos APOL1 van detectar feblement amb una detecció més forta de proteïnes no específiques (bandes de gels que no coincidien amb el pes molecular d'APOL1, Taula suplementària 1B a les dades S1). La majoria dels anticossos van detectar proteïnes inespecífiques addicionals, que variaven segons la font dels extractes de proteïnes (taula suplementària 1B a les dades S1). Algunes d'aquestes bandes de gel no específiques es podrien eliminar amb el pretractament d'extractes de proteïnes amb enzims desglicosilants (no mostrats), cosa que suggereix que el reconeixement de l'epítop depenia dels glicans. En proves d'immunohistoquímica, el ronyó de ratolí de tipus salvatge utilitzat com a control negatiu es va comparar amb el ronyó de ratolí transgènic APOL1 (taula suplementària 1C a les dades S1). Molts dels anticossos anti-APOL1 van detectar erròniament proteïnes en el ratolí de tipus salvatge.ronyons, inclosa una immunotinció molt forta als túbuls (figura suplementària 1 a les dades S1). A partir d'aquests estudis de validació, vam seleccionar un lot d'anticossos policlonals Sigma amb detecció fora de l'objectiu limitada per examinar els patrons d'expressió APOL1.
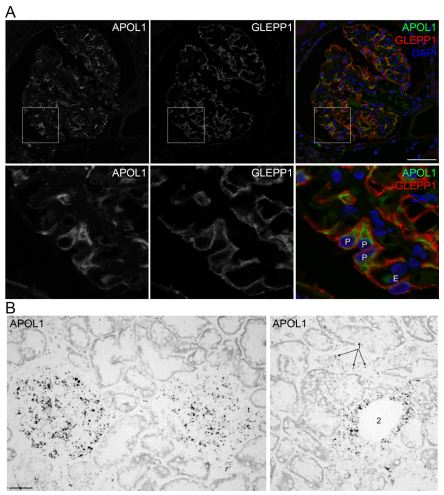
En l'humàronyons, la proteïna APOL1 es va detectar per immunofluorescència en glomèruls però no en túbuls (Fig 1A). Es van observar patrons d'expressió similars als ronyons humans mitjançant la hibridació in situ d'ARNm. L'ARNm d'APOL1 estava present als glomèruls, capil·lars peritubulars i vasos més grans del ronyó, però no en cap segment de túbul (figura 1B). Un estudi previ de receptors de trasplantament de fetge humà va establir que la proteïna APOL1 circulant és produïda en gran part pel fetge [21]. Al fetge humà, els patrons d'expressió de la proteïna APOL1 i de l'ARNm eren similars, amb l'expressió detectada en hepatòcits i endotelis vasculars. En els ratolins, l'expressió APOL1 era qualitativament inferior als hepatòcits de la zona 1 i 2 en comparació amb els hepatòcits de la zona 3, mentre que, en humans, els hepatòcits de les tres zones eren similars en el nivell d'expressió (figura suplementària 2 a les dades S1). Els teixits del fetge del ratolí eren d'adults sans, mentre que els teixits del fetge humà eren marges normals de les reseccions de càncer que també tenien evidències histopatològiques d'esteatosi, la qual cosa podria contribuir a aquesta diferència.

Símptomes d'insuficiència renal de Cistanche
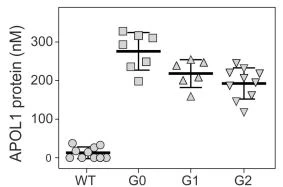
El patró d'expressió observat al teixit humà es va confirmar en tres línies de ratolí transgèniques que expressaven un BAC humà que abastava tota la regió genòmica APOL1 per als al·lels G0, G1 o G2 [17, 18]. La proteïna APOL1 era abundant als podòcits i també es trobava en cèl·lules endotelials de capil·lars glomerulars, capil·lars peritubulars i endotelis de vasos més grans (Fig 2A). No es va detectar cap proteïna APOL1 altúbul proximalo qualsevol altre segment tubular (Fig 2B). També similar als humans, els ratolins transgènics BAC-APOL1 tenien abundant APOL1 a la sang (figura 3) i expressaven la proteïna APOL1 i l'ARNm als hepatòcits del fetge (figura suplementària 2 a les dades S1). En elronyó, aquesta proteïna APOL1 circulant també es va poder detectar a la sang atrapada als espais vasculars (Fig 2B). No hi va haver cap diferència en els patrons d'expressió d'APOL1 entre els ratolins que expressen APOL1-G{0, -G1 o -G2 (figura 2B), i és coherent amb estudis anteriors en biòpsies humanes de pacients amb APOL1 diferent. genotips[8, 10, 22]. Els patrons d'expressió de la proteïna APOL1 també es van confirmar mitjançant la hibridació in situ d'ARNm (Fig 4). Es van examinar els tres genotips APOL1, però no hi va haver diferències basades en el genotip APOL1. Coherent amb l'humàronyó(Fig 1), APOL1 es va expressar inpodòcits (tipus cel·lular confirmat amb ecoetiquetatge amb Nphs1) i endotelial vascular (tipus cel·lular confirmat amb ecoetiquetatge amb Pecam1), inclosos capil·lars glomerulars, capil·lars peritubulars i vasos més grans. No es va detectar l'expressió APOL1túbuls proximalso qualsevol altre segment tubular.
Fig 1. Expressió de la proteïna APOL1 i l'ARNm en humansronyó. A. Expressió de proteïna APOL1 mitjançant microscòpia d'immunofluorescència utilitzant anticossos anti-APOL1 validats, amb co-immunotinció amb GLEPP1 per identificar podòcits i DAPI com a tinció nuclear. B. Expressió d'ARNm d'APOL1 per hibridació in situ. L'expressió era evident en podòcits ("P") i endotelis vasculars dels capil·lars glomerulars ("E"), capil·lars peritubulars ("1", fletxes) i epitelis de vasos més grans ("2"), però no epitelis tubulars. Barra d'escala=40μm
Cistanche-ronyó
Cap dels ratolins BAC-APOL1 va desenvolupar espontàniament proteinúria, que és coherent amb la descripció original d'aquests models de ratolí [17, 18], però va desenvolupar una proteinuria pesada quan es va creuar amb un model de nefropatia associada al VIH (Fig 5). Utilitzant immunofluorescència, es va observar una immunotinció inespecífica d'anticossos anti-APOL1 al ratolí de tipus salvatge i HIVAN.ronyons, principalment a la càpsula Bowman (Fig 6A). En els ratolins entrecreuats amb proteinúria, la proteïna APOL1 era evident als glomèruls, però no es va detectar cap proteïna APOL1 infiltrada o dins.túbuls proximals(Fig 6B). Per Western blotting, APOL1 no es va poder detectar a l'orina buida de ratolins proteïnúrics (dades no mostrades). Tampoc hi va haver cap diferència en el patró d'expressió d'APOL1 entreproteïnúricRatolins que expressen APOL{{0}}G0, -G1 o -G2. Aquests mateixos ronyons de ratolí es van immunocolorir per a APOA1 i es va filtrar l'apolipoproteïna, com a control positiu per a la distribució vascular itúbul proximalpatrons de reabsorció. De manera similar a APOL1, APOA1 al plasma es va detectar fàcilment als capil·lars glomerulars. Tanmateix, com que APOA1 es filtra, també estava present en gotes de reabsorció de proteïnes a la vora del raspall del túbul proximal (Fig 6C). En el context de la proteinúria, les gotes de reabsorció que contenen APOA1-va augmentar en nombre i mida altúbul proximalvora del pinzell. No es va observar un patró similar al túbul proximal amb APOL1.
Fig 2. Expressió de la proteïna APOL1 en el ratolí transgènic BAC-APOL1ronyons. A. Tinció immunofluorescent per a APOL1, nefrina (per identificar podòcits) i CD31 (per identificar cèl·lules endotelials) al ronyó transgènic de ratolí BAC-APOL1 (es mostra el ratolí G1). B. Comparació dels patrons d'expressió d'APOL1 en les tres línies transgèniques APOL1.Túbuls proximalses van identificar mitjançant l'etiquetatge amb lectina fluorescent de Lotus tetragonolobus (LT). L'APOL1 estava present en endotelis vasculars (punts de fletxa), en podòcits (fletxes) i atrapat en espais vasculars (�), però no en epitelis tubulars. Barra d'escala=40μm

Fig 3. Proteïna APOL1 en circulació en els models de ratolí transgènic BAC-APOL1. Els nivells de proteïna APOL1 en plasma es van mesurar mitjançant immunoassaig en ratolins transgènics en comparació amb els companys de camada de tipus salvatge (WT) de tipus salvatge (WT, n=10; G0, n=6; G1, n { {11}}; G2, n=10; tots els animals eren mascles, d'aproximadament 21 setmanes d'edat). Els nivells d'expressió APOL1 a cada línia transgènica eren tots significativament diferents de WT (P<0.0001). data="" are="" mean±sd,="" one="" measurement="" per="" animal,="" with="" significance="" determined="" by="" one-way="">
Discussió
L'especificitat d'anticossos s'ha reconegut com un dels reptes més importants que afecta la investigació reproducible [23]. Nosaltres i altres havíem informat originalment que hi havia proteïna APOL1túbuls proximalsde subjectes normals i malalts [8, 9]. Tanmateix, el nostre treball continuat amb altres anticossos anti-APOL1 i utilitzant la hibridació in situ d'ARNm va indicar que APOL1 no s'expressava als túbuls proximals [10]. Una possibilitat restant és que la sang de la proteïna APOL1 es filtri i es reabsorbeixi, donant lloc a l'aparició de la proteïna APOL1 enproximaltúbuls. Mitjançant mètodes in situ que no es basen en anticossos, juntament amb els ratolins transgènics humans BAC-APOL1 recentment disponibles, ni la proteïna APOL1 ni l'ARNm APOL1 no es van poder detectar a l'epiteli tubular. En el context de la proteinúria, APOL1 tampoc es va filtrar. A les nostres mans, l'anticòs policlonal de conill Sigma reconeix constantment l'APOL1 humà, però hi ha diferències entre lots amb el reconeixement d'altres proteïnes. El lot policlonal de conill Sigma utilitzat en els estudis aquí no replica el forttúbul proximaltaca observada en lots anteriors venuts amb el mateix número de catàleg. Tot i que els anticossos monoclonals eliminarien la variació inherent als lots de producció d'anticossos policlonals, els anticossos monoclonals comercials provats tenien una inespecificitat significativa o una sensibilitat pobra per a APOL1. Un informe recent que descriu el desenvolupament i la validació d'un gran nombre d'anticossos monoclonals contra l'APOL1 humà tampoc no va identificar la tinció del túbul proximal a l'ésser humà.ronyons[24].
Evidència en contratúbul proximall'expressió d'APOL1, o un paper del túbul proximal a les ERC1-associades a APOL, s'acumula a partir de diversos altres grups. Un estudi que utilitzava models de ratolins transgènics APOL1 humanitzats similars creats amb fòsmids tampoc no va trobar l'expressió APOL1 al túbul proximal mitjançant mètodes de detecció de proteïnes i ARNm [25]. L'ús de models transgènics amb expressió d'APOL1 inducible que restringeixen l'expressió a podòcits o túbuls trobats amb proteinúria i patologia renal només es produeix quan APOL1 s'expressa als podòcits i no al túbul [6]. Com a evidència que corrobora en humans, diversos estudis sobre el proteoma de l'orina humana [26–30] no van identificar la proteïna APOL1 a l'orina, la qual cosa també indica que APOL1 no es filtra en cap quantitat detectable.
Els nostres estudis no descarten el possible alliberament de petites quantitats d'APOL1 al filtrat primari dels podòcits, ja sigui per secreció o alliberament passiu quan un podòcit mor i es lisa. A diferència de l'APOL1 expressat i secretat pels hepatòcits, els principals podòcits de transcriptina APOL1 no tenen un pèptid senyal complet [15], i no hi ha proves concloents que els podòcits segreguin APOL1. Alternativament, alguns estudis van observar que els alts nivells d'APOL1 induïts per la malaltia també poden produir isoformes empades alternativament rares amb diferents seqüències de pèptids senyal que possiblement permeten la secreció [24, 31–33]. Aquestes possibles fonts alternatives d'infiltrat d'APOL1 haurien estat per sota dels límits de detecció en els assajos que nosaltres i altres investigadors hem utilitzat enronyóteixit i orina i seria una explicació poc probable per a la robusta expressió d'APOL1 informada anteriorment als túbuls proximals. A més, no està clar si aquest nivell baix potencial d'infiltrat d'APOL1 derivat de podòcits tindria importància fisiològica, tenint en compte que en humans, els nivells basals d'expressió d'APOL1 no estan associats amb CKD. Els nostres estudis tampoc no poden descartar possibles diferències en l'expressió d'APOL1 entre els humans i els ratolins transgènics BAC-APOL1. La funció dels podòcits iproximaltúbulsLa filtració i la reabsorció de la sang són fonamentalment similars entre humans i ratolins, però, hi ha limitacions reconegudes de l'ús de ratolins pel que fa a la replicació de malalties renals glomerulars humanes [34].
Fig 4. Expressió de l'ARNm d'APOL1 en els models de ratolí transgènic BAC-APOL1. Hibridació in situ d'ARNm dúplex per a l'expressió gènica (AD) APOL1 i nefrina (Nphs1) i expressió (EK) APOL1 i CD31 (Pecam1) a cèl·lules orendotelials de podòcits identificats respectivament. L'expressió APOL1 es va detectar en capil·lars peritubulars (fletxes 1), arterioles (fletxes 2), capil·lars glomerulars (fletxes 3), podòcits (fletxes 4) i artèries més grans (fletxes interlobulars) ("5"). i venes ("6") però notúbuls proximals("PT") o qualsevol altre segment tubular. Les imatges mostrades són de ratolins BAC-APOL1-G0 i BAC-APOL1-G1.
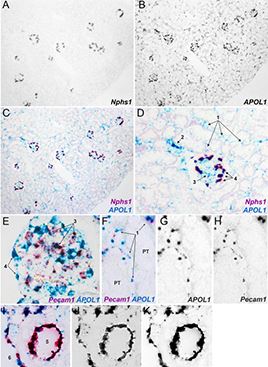
Fig 5. Els models de ratolí transgènic BAC-APOL1 van desenvolupar una proteinúria similar quan es van encreuar amb el model HIVANmouse. A. Exemple de proteinúria en ratolins transgènics simples i duals avaluats per electroforesi en gel d'orina (tinció de Coomassie). La punta de fletxa marca l'albúmina i les proteïnes urinàries de baix pes molecular addicionals (asterisc) són troballes anormals en ratolins. B. Western blot de sèrum de ratolí en els mateixos ratolins transgènics únics i dobles que mostra el manteniment d'alts nivells de proteïna sèrica APOL1 en el context de la proteinúria. APOA1 Western blot com a control per a una proteïna sèrica comuna que es filtra lliurement. Es mostra una taca representativa; el nombre d'animals examinats a cada grup de genotips van ser: tipus salvatge, n=3; HIVAN4, n=6; G0 x HIVAN4, n=6; G1 x HIVAN4, n=3; G2 x HIVAN4,n=4

El treball presentat aquí i altres estudis publicats han mostrat similituds significatives entre els humans [8–10, 24] i els patrons d'expressió APOL1 del ratolí transgènic [17, 18, 24]. L'observació coherent i productiva d'aquests estudis combinats és una expressió d'APOL1 en podòcits i en cèl·lules endotelials dels capil·lars glomerulars, capil·lars peritubulars i vasos sanguinis més grans. A més, les observacions aquí donen suport indirectament a les conclusions d'estudis anteriors [4, 5] que és poc probable que la proteïna APOL1 circulant contribueixi aronyópatogènesi de la malaltia, ja que no és la font d'APOL1 localitzat als ronyons. L'avaluació de la contribució de l'APOL1 expressat per podòcits i endotelials és un focus lògic per a futurs estudis que examinin el mecanisme de les contribucions de la variant de risc d'APOL1 a la patogènesi de la CKD.
Fig 6. APOL1 no apareix als túbuls proximals aproteïnúricRatolins transgènics BAC-APOL1. A. Controlar la immunocoloració en ratolins HIVAN4 no transgènics (de tipus salvatge) i proteïnúrics per a APOL1 juntament amb la unió de lectina fluorescent Lotustetragonolobus ("LT") per delimitar latúbul proximalvora del pinzell. Com que els ratolins de tipus salvatge i HIVAN4 no tenen APOL1, la tinció observada a les cèl·lules parietals (fletxes) és un artefacte. B. Immunotinció per APOL1 aproteïnúricRatolins BACtransgènics de cada genotip APOL1 (es mostren imatges representatives, el nombre d'animals examinats a cada grup de genotips era el mateix que a la figura 5). Les imatges es mostrentúbuls proximalsa la transició amb la càpsula Bowman. La regió en caixa s'amplia a sota de cada panell juntament amb els canals fluorescents aïllats que es mostren en blanc i negre. C. Control positiu immunotinció per a una lipoproteïna filtrada, APOA1, i lectina de Lotus tetragonolobus ("LT") marcada amb fluorescència. Es mostren un ratolí APOL1-G0 i un ratolí APOL1-G{0 x HIVAN4 transgènic dual amb proteinúria; a sota de cada panell de color respectiu hi ha els canals fluorescents individuals (en blanc i negre) de la regió en caixa per a la lectina LT o l'APOA1. Les fletxes blanques marquen capil·lars glomerulars que contenen proteïna APOA1 circulant dins dels lúmens capil·lars, les fletxes vermelles denoten APOA1 en gotes de reabsorció de proteïnes a la vora del pinzell dels túbuls proximals. Barra d'escala=40μm.

Informació de suport
Dades S1. Figures i taules suplementàries.(PDF)
S1 Imatges en brut. Imatges de gel originals sense retallar.(PDF)
Agraïments
Donem les gràcies a William Baldwin i Nina Dvorina per l'ajuda amb els estudis de validació d'anticossos
Aportacions de l'autor
Conceptualització: Sethu M. Madhavan, Myung K. Shin, Maarten Hoek, John R. Sedor, JohnF. O'Toole, Leslie A. Bruggeman.Comissariat de dades: Jonathan W. Choy, Michelle Chen, Myung K. Shin, Leslie A. Bruggeman.Anàlisi formal: Sethu M. Madhavan, Jonathan W. Choy, Michelle Chen, Myung K. Shin ,Maarten Hoek, John R. Sedor, John F. O'Toole, Leslie A. Bruggeman. Adquisició de finançament: John R. Sedor, John F. O'Toole, Leslie A. Bruggeman.Investigació: Natalya A. Blessing, Zhenzhen Wu , Sethu M. Madhavan, Jonathan W. Choy,Michelle Chen, Leslie A. Bruggeman.Metodologia: Zhenzhen Wu, Sethu M. Madhavan, Jonathan W. Choy, Michelle Chen, LeslieA. Bruggeman.Administració del projecte: Myung K. Shin, Maarten Hoek, John R. Sedor, John F. O'Toole,Leslie A. Bruggeman.Recursos: Myung K. Shin.Supervisió: Myung K. Shin, Maarten Hoek, John R. Sedor, John F. O'Toole, Leslie A.Bruggeman.Validació: Myung K. Shin.Escriptura – esborrany original: Natalya A. Blessing, Leslie A. Bruggeman.Escriptura – revisió i edició: Zhenzhen Wu, Sethu M. Madhavan, Jonathan W. Choy, MichelleChen, Myung K. Shin, Maarten Hoek, John R. Sedor, John F. O'Toole, Leslie A.Bruggeman.

Referències
1. Genovese G, Friedman DJ, Ross MD, Lecordier L, Uzureau P, Freedman BI, et al. Associació de variants tripanolítices ApoL1 ambronyómalaltia en els afroamericans. Ciència. 2010; 329(5993):841–5.https://doi.org/10.1126/science.1193032 PMID: 20647424
2. Genovese G, Tonna SJ, Knob AU, Appel GB, Katz A, Bernhardy AJ, et al. Un al·lel de risc per a la glomerulosclerosi segmentària focal en afroamericans es troba dins d'una regió que conté APOL1 i MYH9. Ronyó Int. 2010; 78(7):698–704. https://doi.org/10.1038/ki.2010.251 PMID: 20668430
3. Tzur S, Rosset S, Shemer R, Yudkovsky G, Selig S, Tarekegn A, et al. Les mutacions de missense en el gen APOL1 estan molt associades amb el risc de malaltia renal en fase final atribuït prèviament al gen MYH9. Hum Genet. 2010; 128(3):345–50. https://doi.org/10.1007/s00439-010-0861-0 PMID:20635188
4. Bruggeman LA, O'Toole JF, Ross MD, Madhavan SM, Smurzynski M, Wu K, et al. Els nivells plasmàtics d'apolipoproteïna L1 no es correlacionen amb la ERC. Melmelada. Soc. Nefrol. 2014; 25(3):634–44. https://doi.org/10.1681/ASN.2013070700 PMID: 24231663
5. Kozlitina J, Zhou H, Brown PN, Rohm RJ, Pan Y, Ayanoglu G, et al. Els nivells plasmàtics de la variant de risc APOL1 no s'associen amb la malaltia renal en una cohort basada en la població. Melmelada. Soc. Nephrol.2016; 27(10):3204–19. https://doi.org/10.1681/ASN.2015101121 PMID: 27005919
6. Beckerman P, Bi-Karchin J, Park AS, Qiu C, Dummer PD, Soomro I, et al. Indueix l'expressió transgènica de variants de risc d'APOL1 humana en podòcitsronyómalaltia en ratolins. Nat. Med. 2017; 23(4):429–38. https://doi.org/10.1038/nm.4287 PMID: 28218918
7. Weckerle A, Snipes JA, Cheng D, Gebre AK, Reisz JA, Mura M, et al. Caracterització dels complexos proteics APOL1 circulants en afroamericans. J Lipid Res. 2016; 57(1):120–30. https://doi.org/10.1194/jlr.M063453 PMID: 26586272
8. Madhavan SM, O'Toole JF, Konieczkowski M, Ganesan S, Bruggeman LA, Sedor JR. Localització d'APOL1 en ronyó normal i malaltia renal no diabètica. Melmelada. Soc. Nefrol. 2011; 22(11):2119–28.https://doi.org/10.1681/ASN.2011010069 PMID: 21997392
9. Ma L, Shelness GS, Snipes JA, Mura M, Antinozzi PA, Cheng D, et al. Localització de la proteïna APOL1 i l'ARNm en l'ésser humàronyó: teixit no malalt, cèl·lules primàries i línies cel·lulars immortalitzades. J. Am.Soc. Nefrol. 2015; 26(2):339–48. https://doi.org/10.1681/ASN.2013091017 PMID: 25012173
10. Madhavan SM, O'Toole JF, Konieczkowski M, Barisoni L, Thomas DB, Ganesan S, et al. Les variants APOL1 canvien la dinàmica conformacional C-terminal i la unió a la proteïna SNARE VAMP8. JCI Insight.2017; 2(14):e92581. https://doi.org/10.1172/jci.insight.92581 PMID: 28724794
11. Raper J, Fung R, Ghiso J, Nussenzweig V, Tomlinson S. Caracterització d'un nou factor lític de tripanosoma a partir de sèrum humà. Immunitat contra la infecció. 1999; 67(4):1910–6. https://doi.org/10.1128/IAI.67.4.1910-1916.1999 PMID: 10085035
12. Smith AB, Esko JD, Hajduk SL. La matança de tripanosomes per la proteïna relacionada amb l'haptoglobina humana. Ciència. 1995; 268(5208):284–6. https://doi.org/10.1126/science.7716520 PMID: 7716520
13. Vanhamme L, Paturiaux-Hanocq F, Poelvoorde P, Nolan DP, Lins L, Van Den Abbeele J, et al. L'apolipoproteïna LI és el factor lític del tripanosoma del sèrum humà. Naturalesa. 2003; 422(6927):83–7. https://doi.org/10.1038/nature01461 PMID: 12621437
14. Gutierrez OM, Judd SE, Irvin MR, Zhi D, Limdi N, Palmer ND, et al. Les variants de risc de nefropatia APOL1 estan associades amb perfils alterats de lipoproteïnes d'alta densitat en afroamericans. Trasplantament de Diàlisi de Nefrol. 2016; 31(4):602–8. https://doi.org/10.1093/ndt/gfv229 PMID: 26152403
15. Duchateau PN, Pullinger CR, Cho MH, Eng C, Kane JP. Família de gens de l'apolipoproteïna L: expressió específica del teixit, splicing, regions promotores; descobriment d'un nou gen. J Lipid Res. 2001; 42(4):620–30.PMID: 11290834
16. Yang H, Fogo AB, Kon V. Ronyons: moduladors clau dels nivells i la funció de lipoproteïnes d'alta densitat. CurrOpin Nephrol Hypertens. 2016; 25(3):174–9. https://doi.org/10.1097/MNH.0000000000000217 PMID:27008596
17. Okamoto K, Rausch JW, Wakashin H, Fu Y, Chung JY, Dummer PD, et al. L'ARN de l'al·lel de risc APOL1 contribueix a la toxicitat renal activant la proteïna cinasa R. Comm. Biol. 2018; 1:188. https://doi.org/10.1038/s42003-018-0188-2 PMID: 30417125
18. Ryu JH, Ge M, Mescher S, Rosenberg AZ, Descente M, Roshanravan H, et al. Les variants de risc renal APOL1 promouen l'acumulació de colesterol en teixits i macròfags cultivats a partir de transgenicmic APOL1. PLoS One. 2019; 14(4):e0211559. https://doi.org/10.1371/journal.pone.0211559 PMID:30998685
19. Prakash S, Papeta N, Sterken R, Zheng Z, Thomas RL, Wu Z, et al. Identificació del locus de susceptibilitat a la nefropatia HIVAN4. Melmelada. Soc. Nefrol. 2011; 22(8):1497–504. https://doi.org/10.1681/ASN.2011020209 PMID: 21784893
20. Bruggeman LA, Wu Z, Luo L, Madhavan SM, Konieczkowski M, Drawz PE, et al. Els models transgènics APOL1-G0 o APOL1-G2 desenvolupen preeclàmpsia però noRonyóMalaltia. Melmelada. Soc. Nefrol. 2016; 27(12):3600–10. https://doi.org/10.1681/ASN.2015111220 PMID: 27026370
21. Shukha K, Mueller JL, Chung RT, Curry MP, Friedman DJ, Pollak MR, et al. La majoria d'ApoL1 és secretada pel fetge. Melmelada. Soc. Nefrol. 2017; 28(4):1079–83. https://doi.org/10.1681/ASN.2016040441 PMID:27932478
22. Sampson MG, Robertson CC, Martini S, Mariani LH, Lemley KV, Gillies CE, et al. La genòmica integrativa identifica noves associacions amb genotips de risc APOL1 en subjectes de NEPTUNE negre. Melmelada. Soc.Nefrol. Març 2016; 27(3):814–23. https://doi.org/10.1681/ASN.2014111131 PMID: 26150607
23. Bradbury A, Pluckthun A. Reproductibilitat: estandarditzar els anticossos utilitzats en la investigació. Naturalesa. 2015; 518(7537):27–9. https://doi.org/10.1038/518027a PMID: 25652980
24. Scales SJ, Gupta N, De Mazière AM, Posthuma G, Chiu CP, Pierce AA, et al. Els anticossos específics de l'apolipoproteïna L1-detecten l'APOL1 endògena dins del reticle endoplasmàtic i a la membrana plasmàtica dels podòcits. Melmelada. Soc. Nefrol. 2020; 31(9):2044–64. https://doi.org/10.1681/ASN.2019080829 PMID: 32764142
25. Aghajan M, Booten SL, Althage M, Hart CE, Ericsson A, Maxvall I, et al. El tractament amb oligonucleòtids antisentit millora la proteinúria induïda per IFN-gamma en ratolins transgènics APOL1-. JCI Insight. 2019; 4(12).https://doi.org/10.1172/jci.insight.126124 PMID: 31217349
26. Adachi J, Kumar C, Zhang Y, Olsen JV, Mann M. El proteoma urinari humà conté més de 1500 proteïnes, incloent una gran proporció de proteïnes de membrana. Genoma Biol. 2006; 7(9):R80. HTTPS://doi.org/10.1186/gb-2006-7-9-R80 PMID: 16948836
27. Li QR, Fan XK, Li RX, Dai J, Wu CC, Zhao SL, et al. Un enfocament integral i no prefraccionat a nivell de proteïnes per al proteoma urinari humà: la fosforilació tàctil a l'orina. Espectre de masses de comunicació ràpida. 2010; 24(6):823–32. https://doi.org/10.1002/rcm.4441 PMID: 20187088
28. Marimuthu A, O'Meally RN, Chaerkady R, Subbannayya Y, Nanjappa V, Kumar P, et al. Un mapa complet del proteoma urinari humà. J Proteoma Res. 2011; 10(6):2734–43. https://doi.org/10.1021/pr2003038 PMID: 21500864
29. Santucci L, Candiano G, Petretto A, Bruschi M, Lavarello C, Inglese E, et al. De centenars a milers: ampliant l'urinoma humà normal. Breu de dades. 2014; 1:25–8. https://doi.org/10.1016/j.dib.2014.08.006 PMID: 26217681
30. Zhao M, Li M, Yang Y, Guo Z, Sun Y, Shao C, et al. Anàlisi i anotació exhaustiva del proteoma urinari normal humà. Informes científics. 2017; 7(1):3024. https://doi.org/10.1038/s41598-017-03226-6 PMID: 28596590
31. Cheatham AM, Davis SE, Khatua AK, Popik W. El bloqueig del lloc d'empalmament 5' de l'exó 4 mitjançant un morfolinooligòmer desencadena el canvi d'isoforma de la proteïna APOL1. Informes científics. 2018; 8(1):8739. https://doi.org/10.1038/s41598-018-27104-x PMID: 29880816
32. Khatua AK, Cheatham AM, Kruzel ED, Singhal PC, Skorecki K, Popik W. La seqüència codificada per l'exó 4-és un determinant important de la citotoxicitat de l'apolipoproteïna L1. Am J Physiol Cell Physiol. 2015; 309(1):C22–37. https://doi.org/10.1152/ajpcell.00384.2014 PMID: 25924622
33. Nichols B, Jog P, Lee JH, Blackler D, Wilmot M, D'Agati V, et al. Les vies d'immunitat innata regulen el gen de la nefropatia Apolipoproteïna L1.RonyóInt. 2015; 87(2):332–42. https://doi.org/10.1038/ki.2014.270 PMID: 25100047
34. Pippin JW, Brinkkoetter PT, Cormack-Aboud FC, Durvasula RV, Hauser PV, Kowalewska J, et al.Models de rosegadors induïbles de malalties de podòcits adquirits. Am J. Physiol Renal Physiol. 2009; 296(2):F213–29. https://doi.org/10.1152/ajprenal.90421.2008 PMID: 18784259