
Part 1: efectes antiinflamatoris, antioxidants, hidratants i antimelanogènesi de la quercetina 3-O{- -D-glucurònit en queratinòcits humans i cèl·lules de melanoma mitjançant l'activació de les vies NF-κB i AP-1
Mar 21, 2022
Per a més informació, contacteutina.xiang@wecistanche.com
Resum: QuercetinaS'ha informat que 3-O- -D-glucurònid(Q-3-G), el conjugat glucurònid de la quercetina, téantiinflamatoripropietats en els macròfags estimulats per lipopolisacàrids, així com propietats anticancerígenes i antioxidants. A diferència de la quercetina, que s'ha descrit àmpliament que posseeix una àmplia gamma d'activitats farmacològiques, inclosos els efectes protectors de la pell, els beneficis farmacològics i els mecanismes de Q-3-G a la pell restaven per dilucidar. Aquest estudi es va centrar a caracteritzar les propietats protectores de la pell, incloses les propietats antiinflamatòries i antioxidants, de Q-3-Contra l'estrès oxidatiu induït per UVB o H2O2-, els efectes d'hidratació iantimelanogènesiactivitats utilitzant queratinòcits humans (HaCaT) i cèl·lules de melanoma (B16F10). Q-3-G va regular a la baixa l'expressió del gen proinflamatori i de les citocines com la ciclooxigenasa-2 (COX{-2) i el factor de necrosi tumoral (TNF) - en H O o UVB - cèl·lules HaCaT irradiades. També vam demostrar que les exposicions O-3-Gexhibits tenen un efecte antioxidant mitjançant assajos d'eliminació de radicals lliures, citometria de flux i una expressió més gran del factor 2 relacionat amb el factor nuclear eritroide 2- (Nrf2). Q-3-G va reduir la producció de melanina a les cèl·lules B16F10 induïdes per l'hormona estimulant dels melanòcits (-MSH). Els efectes i els mecanismes d'hidratació de Q-3-G es van examinar avaluant els gens relacionats amb el factor hidratant, com ara la transglutaminasa-1(TGM{-1), la filagrina (FLG) i l'àcid hialurònic sintasa (TÉ)-1. A més, Q-3-G va augmentar la fosforilació de c-Jun, Jun N-terminal cinasa (JNK), proteïna quinasa activada per mitogen (MAPK) quinasa 4 (MKK4) i TAK1, implicades en els MAPKs/AP -1, i la fosforilació d'IkB , IkB quinasa (IKK)- , Akt i Src, implicades en la via NF-kB. En conjunt, hem demostrat que Q-3-G exerceix propietats antiinflamatòries, antioxidants, hidratants i antimelanogènesis en queratinòcits humans i cèl·lules de melanoma a través de les vies NF-kB i AP-1.
Paraules clau: quercetina 3-O- -D-glucurònid;protecció UV; hidratant; antimelanogènesi; AP-1; NF-kB
1. Introducció
La pell, l'òrgan més gran del cos, ofereix una barrera que juga un paper important en la protecció del cos de l'entorn extern i de factors nocius com la radiació ultraviolada, els microbis infecciosos i els productes químics nocius. Aquesta barrera també regula l'equilibri d'electròlits i la temperatura del cos i evita la pèrdua d'humitat [1,2]. La pell humana està formada per tres capes: l'epidermis, la dermis amb apèndixs i el teixit subcutani [3]. La capa epidèrmica té un paper important en el manteniment de la temperatura corporal.
Els queratinòcits, el component abundant de l'epidermis de la pell, interactuen estretament amb un altre a través de desmosomes i unions estretes que permeten una barrera fisicoquímica eficaç[4]. Tot i que la pell funciona com una barrera protectora, la radiació ultraviolada (UV) té un efecte significatiu en la majoria de cèl·lules, inclosos els queratinòcits, la capa externa de la pell. La radiació UV pot causar envelliment de la pell, danys a la pell, arrugues i hiperpigmentació, que es considera un dels factors de risc més censuradors [5]. La llum UV consta de tres rangs de longitud d'ona: UVA (320-400 nm), UVB. (280-320 nm) i UVC (200-280 nm). A més del peròxid d'hidrogen (H2O2), que se sap que contribueix a l'estrès oxidatiu, la UVB pot conduir a la producció d'espècies reactives d'oxigen (ROS) mitjançant l'activació d'enzims generadors de ROS [6]. S'ha descrit que l'acumulació incontrolada de ROS a les cèl·lules, inclosos els queratinòcits, provoca modificacions oxidatives en lípids, proteïnes, àcids nucleics i altres molècules intracel·lulars que posteriorment condueixen a diversos tipus de danys a la pell i processos relacionats amb l'envelliment, com ara la mort cel·lular, l'estrès oxidatiu, i inflamació [7,8]. A més, se sap que la resposta a l'estrès oxidatiu influeix en el dany de diversos components cel·lulars [9]. Les cèl·lules de la pell danyades també poden provocar respostes inflamatòries, donant lloc a una pell danyada crònicament [10]. Un tipus de dany a la pell mediat per UVB o H2O2-a través de processos biològics és l'expressió de gens inflamatoris com la ciclooxigenasa-2 (COX{-2) i les citocines proinflamatòries [11]. Per tant, el desenvolupament d'efectes protectors de la pell més segurs, més robusts i eficients és essencial per prevenir i bloquejar les malalties associades als danys a la pell mediats per UVB o H2O2.
La hidratació de la pell també juga un paper important en el manteniment de la seva funció normal. En particular, l'estrat corni (SC) té un efecte protector contra la pèrdua d'aigua [12]. El contingut d'aigua de l'estrat còrni participa en la descamació de la pell i en la maduració adequada, mentre que la manca d'aigua en SC afavoreix l'acumulació i la disfunció dels corneòcits [12, 13]. En les etapes finals de la diferenciació dels queratinòcits, la seva membrana plasmàtica i els orgànuls cel·lulars desapareixen, i després l'afluència de calci indueix la transglutaminasa (TGM) per a la reticulació amb altres proteïnes. Una deficiència o pèrdua de TGM-1 condueix a un reticulat defectuós de l'embolcall cel·lular. La ictiosi de lamel·la és un exemple de malaltia causada per una pèrdua de TGM-1. A més, la filagrina (FLG), la matriu de queratina formada, juga un paper en la formació de SC, ja que actua com a bastida per unir proteïnes i lípids de l'embolcall cornificat [14] mitjançant la catalització de reaccions de reticulació de g-glutamil lisina, ATGM i membrana. -enzims associats, que imparteixen integritat als SC [15]. A més, l'àcid hialurònic (HA) és un tipus de factor d'humitat natural (NMF) implicat en la retenció d'humitat a la pell i presenta un perfil diferent en l'envelliment intrínsec de la pell, és un agent d'administració de fàrmacs i és un component important de la matriu extracel·lular. [16,17]. L'HA juga un paper en l'augment de la humitat de la pell mitjançant la regulació dels gens de l'àcid hialurònic sintasa (HAS); a més, l'àcid retinoic (vitamina A) pot regular eficaçment l'HA a l'epidermis [17]. TGM-1, FLG i HAS-12,3 són gens associats amb la producció de NMF [18]. A més, l'activació de factors de transcripció com la proteïna activadora-1(AP{-1) i el factor nuclear (NF)-kB estan implicades en la producció de substàncies proinflamatòries que optimitzen la barrera cutània i la hidratació de la pell. a través de les vies AP-1 i NF-kB[19]. Els enzims de senyalització aigües amunt de la via AP-1 inclouen proteïnes cinases activades per mitògens (MAPK) com la cinasa N-terminal c-Jun (JNK), la cinasa regulada per senyal extracel·lular (ERK) i p38, mentre que Src, Akt, IkB -quinasa (IKKo/ ) i KBO (IkBa) pertanyen a la via NF-KB [20. La pell també produeix melanina a la capa epidèrmica, especialment als melanòcits, la principal font de melanina, que contribueixen a la determinació del color de la pell i la melanogènesi [21]. La irradiació UVB i l'hormona estimulant dels melanòcits (o-MSH) poden estimular la secreció de melanina, provocant així la melanogènesi [22. Durant la melanogènesi, -MSH activa la proteïna cinasa A (PKA), el factor de transcripció associat a la microftàlmia de proteïnes (MITF) i la unió a l'element de resposta de cAMP (CREB) [23]. Es considera que una de les funcions de la melanina és la prevenció dels danys a la pell per UV, inclosa la llum solar. No obstant això, l'excés de producció de melanina o l'absència de contingut de melanina causada per l'envelliment, l'hormona estimulant dels melanòcits i l'exposició als raigs UV promouen les pigues, el melasma, els lentigins senils i altres trastorns d'hiper/hipopigmentació que poden tenir un impacte negatiu en l'aspecte i la pell. salut [24]. Així, també es desitja controlar la melanogènesi per mantenir tant la salut com l'aspecte estètic del cos humà.
Quercetinaés un flavonoide de tipus flavonol assignat predominant present en verdures, fruites, begudes i plantes medicinals [25]. En conseqüència, s'ha estudiat àmpliament la quercetina per tenir beneficis farmacològics, com ara antiinflamatoris, antiateroscleròtics,antioxidant, anticancerígens i propietats protectores de la pell, i està relacionada amb la melanogènesi [24,26-29]. Tanmateix, diversos treballs que utilitzen mètodes sensibles i fiables han demostrat que la quercetina no s'ha detectat al plasma [30-33] i gairebé no es troba al cervell [34,35]. La quercetina, que generalment es presenta com una forma de glucòsid, s'absorbeix bé i principalment s'hidrolitza i es metabolitza a l'intestí prim, el còlon, el fetge i el ronyó en metabòlits conjugats [30,36-38). A la sang circulant només es detecten els metabòlits conjugats com el glucurònid o el sulfat (metilat o no metilat, respectivament), en lloc de la quercetina aglicona o els seus glucòsids. S'han identificat 3/-metil-quercetina-3-glucurònid, quercetina-3-glucurònid i quercetina-3'-sulfat com a metabòlits plasmàtics principals després d'1,5 h després del consum de ceba fregida[30, 32]. Aquests metabòlits de quercetina es formen a l'intestí prim i al fetge per enzims de biotransformació incloses les UDP-glucuroniltransferases com a resultat del metabolisme de la fase II [29,39,40]. També es va informar que els metabòlits conjugats de la quercetina s'acumulen al plasma humà en el rang de concentració de 10-' a 10- grau M després de la ingestió periòdica de ceba amb els àpats durant 1 setmana[41]. La vida mitjana dels metabòlits de la quercetina és bastant alta, entre 11 i 28 hores [29]. Atès que aquests compostos s'han observat com les principals formes de metabòlits de quercetina conjugada, serien essencials estudis centrats en l'activitat biològica dels flavonols mitjançant aquests metabòlits conjugats, fet que ens va impulsar a estudiar l'activitat biològica d'un dels metabòlits de quercetina conjugada. Un dels metabòlits glucurònids més abundants que es troben principalment al plasma i teixits, inclosos el fetge, els ronyons i el cervell és la quercetina 3-O- -D-glucurònid (Q{-3-G) (figura 1) [31,35,40,42,43], que poden generar activitats similars, més fortes o més febles en comparació amb els compostos progenitors en diferents models. Q-3-G es transporta als teixits objectiu mitjançant plasma per exercir la seva activitat biològica [39]. També s'ha demostrat que l'O-3-G és un metabòlit efectiu al plasma de rata després de l'administració oral de quercetina [43]. En altres estudis, s'ha trobat que el metabòlit que conté Q-3-G s'acumula a l'aorta després de l'administració d'aliments rics en quercetina i s'ha identificat com un principi actiu detectat en sang humana que va des de 0.{{48} } μM【44】. A més, el Q-3-G es pot trobar en el vi [45] i en plantes medicinals com Hypericum hirsutum, Nelumbo nucifera, Oenothera biennis i les mongetes verdes [{46-49].Q{-3-G s'ha descrit com un component antiinflamatori en condicions estimulades per LPS i ha mostrat propietats antioxidants al plasma sanguini [50-52]. Tanmateix, en comparació amb la llarga història d'aplicació i l'ampli estudi de la quercetina, l'estudi de Q-3-G encara s'ha d'explorar. Per tant, Q-3-G es va triar com a representant dels metabòlits de la quercetina com a jugador actiu in vivo de la quercetina. A més, encara no s'ha dilucidat del tot el paper de Q-3-G en els efectes protectors de la pell. En aquest estudi, utilitzant diverses avaluacions in vitro, vam investigar els efectes protectors de la pell de Q-3-G contra l'estrès oxidatiu i la inflamació induïts per UVBor H2O2-, la hidratació de la pell a HaCaT (una línia cel·lular de queratinòcits humans) cèl·lules i activitat antimelanogènesi en cèl·lules B16F10 (una línia cel·lular de melanoma murí).

2. Resultat
2.1. Efectes antiinflamatoris i antioxidants de Q-3-G contra UVB o H2O2-Cèl·lules HaCaT estimulades
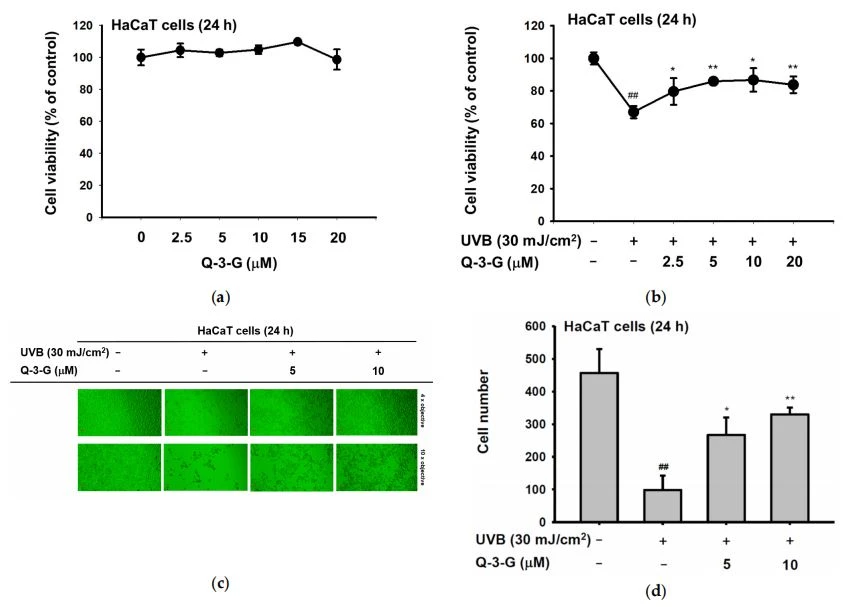
El teixit de la pell es pot danyar per la radiació UV. La radiació UV activa diversos factors nocius, com ara l'estrès oxidatiu, la mort cel·lular apoptòtica, la inflamació i l'envelliment de la pell. Per tal de determinar les activitats de protecció UV de Q-3-G, inicialment, vam avaluar si Q-3-G té algun efecte sobre la viabilitat cel·lular dels queratinòcits humans. Mitjançant un assaig de 3-(4-5-dimetiltiazol-2-il){-2,5-difenil{-243 bromur de tetrazoli (MTT), vam investigar els efectes citotòxics d'O-3-G a les cèl·lules HaCa. Com es mostra a la figura 2a, no hi va haver interferències significatives en la viabilitat cel·lular a una concentració de 2,5-20 uM per Q-3-G, la qual cosa va indicar que O{-3-G no mostrava citotoxicitat fins a 20 μM i no va danyar els queratinòcits, la capa superficial de les cèl·lules de la pell. A continuació, vam avaluar els efectes protectors de la pell de Q-3-G a les cèl·lules HaCaT exposades a UVB. Després de la irradiació UVB a 30 mJ/cm², Q-3-G va protegir significativament les cèl·lules HaCaT de la mort cel·lular induïda per UVB de manera dependent de la concentració (figura 2b). D'acord amb l'assaig MTT, utilitzant una càmera connectada a un microscopi per capturar la morfologia de les cèl·lules HaCaT, Q-3-G va protegir contra la mort cel·lular a causa de les cèl·lules HaCaT irradiades amb UVB fins a una concentració de 10 μM (Figura 2c) . El nombre de cèl·lules HaCaT sota cada condició va ser de 482 per al grup no tractat, 91 per al grup UVB 30 mJ/cm, 276 per al grup UVB 30 mJ/cm² més 5μM O-3-G i 320 per al grup UVB 30 mJ/cm² més 10μM Q-3-G Group (figura 2d). Aquests resultats van confirmar que Q-3-G inhibeix el dany HaCaT induït per UVB i rescata l'efecte protector de la pell de la irradiació UVB.
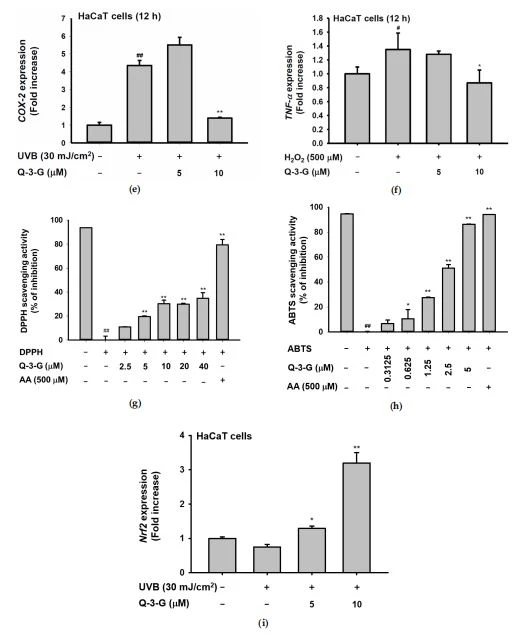
L'aparició i l'exacerbació de la inflamació al cos de tant en tant activen els macròfags i alliberen algunes citocines. La inflamació és un segell distintiu de l'estrès oxidatiu. Hem investigat l'efecte antiinflamatori de Q-3-G contra la inflamació induïda per UVB o HO2-. És ben sabut que els UVB poden promoure el dany de l'ADN i la inflamació a les cèl·lules de la pell 【10】. Vam irradiar les cèl·lules HaCaT amb UVB 30 mJ/cm² i vam incubar les cèl·lules HaCaT amb H2O2 (500 uM). Hem utilitzat un assaig de PCR en temps real per comprovar l'expressió d'ARNm de l'enzim inflamatori COX-2 i la citocina proinflamatòria TNF-. Tal com mostren els resultats de la figura 2e,f, una concentració de 10 μM d'O-3-G va inhibir significativament l'expressió d'ARNm de COX-2 i TNF-. En conseqüència, Q-3-G va suprimir les respostes inflamatòries induïdes a les cèl·lules HaCaT després de l'exposició a la irradiació UVB o H2O2.
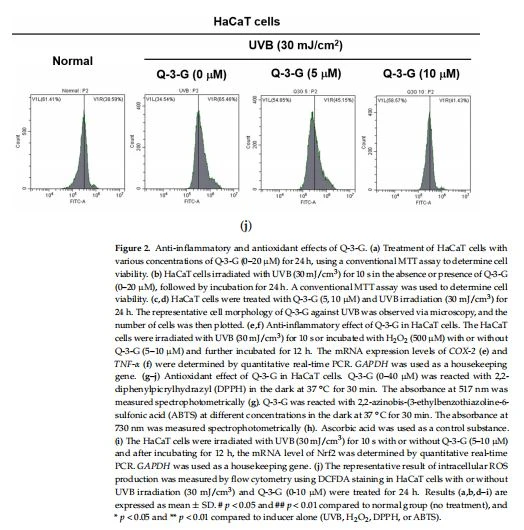
Hem utilitzat assajos d'eliminació de radicals 2,2'-azinobis-(3-etilbenzotiazolina-6-àcid sulfònic) (ABTS) i 2,2-difenil-lpicrilhidrazil (DPPH) - sistemes de models àmpliament utilitzats per investigar les activitats d'eliminació in vitro de compostos naturals, per avaluar la propietat antioxidant de Q-3-G a diferents concentracions. Les cèl·lules HaCaT es van tractar amb Q-3-G de manera dependent de la concentració a partir de 2.5-40 μM en presència de DPPH, i el resultat va mostrar una activitat d'eliminació significativa a més de 2, 5 uM (figura 2g) . L'assaig ABTS també va demostrar significativament els efectes de Q-3-G sobre l'eliminació de radicals lliures de maneres dependents de la concentració amb un valor IC50 d'1,75 μM (figura 2h). L'àcid ascòrbic (AA), com a control positiu, va mostrar els efectes antioxidants més grans tant en assajos DPPH com ABTS. S'ha informat que el factor 2 relacionat amb el factor eritroide 2-nuclear (Nrf2), un dels gens que depenen de l'element de resposta antioxidant (ARE), regula les oxidoreductases protectores i els seus substrats nucleòfils, promovent així els enzims antioxidants per eliminar els danys i reparar-los. sistemes [53]. A continuació, vam examinar el nivell d'expressió de Nrf2 a les cèl·lules HaCaT irradiades amb UVB. Reforçant les troballes anteriors, O-3-G va millorar significativament el nivell d'expressió de Nrf2 a la irradiació UVB en comparació amb el control de manera dependent de la concentració, fins a 10 uM (Figura 2i), la qual cosa implicava que Q-3- G presenta un efecte antioxidant tant química com biològicament amb una propietat d'eliminació de radicals lliures i augmenta l'efecte protector de la senyalització ARE depenent de Nrf2-, respectivament. A més, també vam realitzar citometria de flux ROS mitjançant diacetat de diclorodihidrofluoresceïna (DCFDA) en condicions UV. L'antioxidant és àmpliament conegut per suprimir els estressors cel·lulars inhibint la producció de ROS [54]. El resultat va mostrar que el tractament amb Q-3-G a concentracions de 5 i 10 μM va disminuir el nivell de ROS induït per UVB (Figura 2j). En conjunt, aquestes dades van implicar que Q-3-Gexerta propietats protectores de la pell, com ara efectes antiinflamatoris i antioxidants contra l'H2O, o l'estrès oxidatiu i la inflamació induïts per UVB a les cèl·lules HaCaT.

2.2. Efecte antitimelanogènesi en B16F10 i efecte hidratant en cèl·lules HaCaT de Q-3-G
Per examinar els efectes de l'O-3-G sobre la melanogènesi, les cèl·lules del melanoma es van tractar amb -MSH durant 48 h per secretar melanina a les cèl·lules B16F10. Mitjançant l'ús d'assajos MTT, primer vam confirmar que Q-3-G no tenia citotoxicitat a les cèl·lules B16F10 a concentracions de fins a 20 μM durant 48 h (figura 3a). Aquest resultat va mostrar, per a les properes avaluacions, que els efectes de l'O-3-G a B16F10 no es deuen a la mort cel·lular. A continuació, vam avaluar B16F10 amb Q-3-Gand -MSH durant 48 h per determinar els efectes de Q{-3-G sobre la melanogènesi. Com es mostra a la figura 3b, Q-3-G va inhibir significativament la secreció de melanina. L'arbutina de control positiu també va disminuir significativament la secreció de melanina.
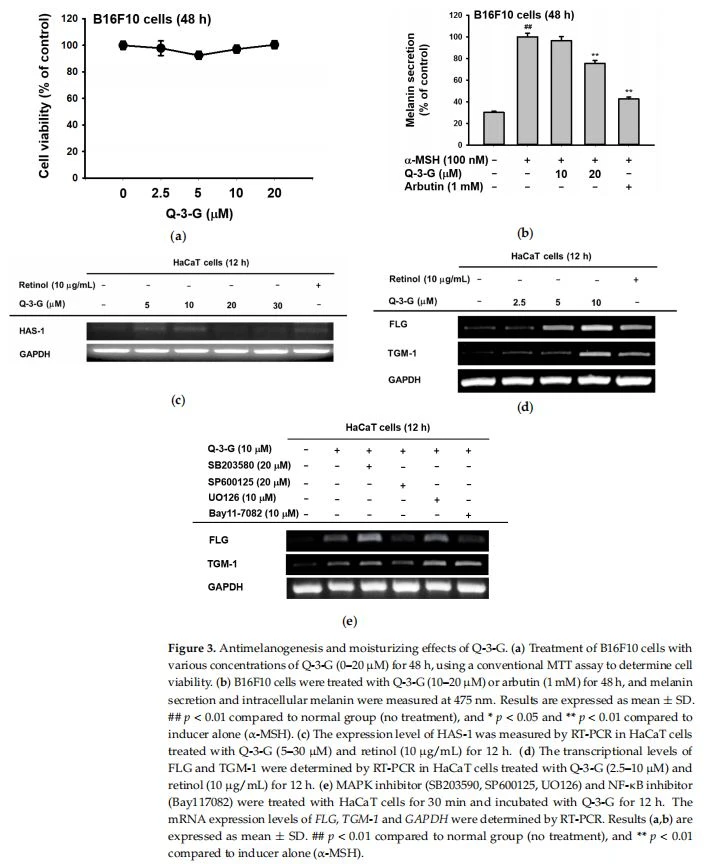
La molècula relacionada amb la humitat de la pell és l'àcid hialurònic (HA). Com s'ha esmentat anteriorment, l'HA, distribuït per l'epidermis i la dermis, és un NMF que millora la hidratació de la pell [55]. Hem utilitzat un assaig de PCR de transcripció inversa (RT-PCR) per examinar el nivell de transcripció de HAS-1 després de 12 h amb una concentració de Q-3-G de fins a 30 uM. HAS promou l'acumulació d'HA de mida intermèdia dins dels queratinòcits [12]. Com es mostra a la figura 3c, l'expressió de HAS-1 es va augmentar amb el tractament amb Q-3-G fins a 10 μM. A més del factor hidratant, també vam examinar l'expressió de FLG i TGM{{ 13}}. Hem utilitzat retinol com a grup de control positiu. Els nivells de transcripció de FLG i TGM-1 van augmentar notablement després del tractament amb Q-3-G a concentracions de fins a 10 μM (figura 3d). Aquestes troballes suggereixen que la Q-3-G té activitat hidratant de la pell a les cèl·lules HaCaT. A més, utilitzant SB203580 (inhibidor de p38), SP600125 (inhibidor de JNK), UO126 (inhibidor d'ERK) i Bay11-7082 (inhibidor de NF-kB), vam examinar la implicació de les vies de senyalització MAPK i NF-kB en la hidratació. factor de cèl·lules HaCaT tractades amb Q-3-G. A partir de l'expressió gènica induïda per O-3-G, tant els nivells de TGM-1 com de FLG es van reduir mitjançant el tractament amb SP600125, un inhibidor de JNK (figura 3e), cosa que suggereix que es necessita JNK per augmentar l'expressió. de TGM-1 i FLG pel que fa a l'efecte hidratant de la pell de l'O-3-G. A més, l'expressió FLG també va ser disminuïda per Bay11-7082, un inhibidor d'IKK i IkB , cosa que suggereix que el mecanisme farmacèutic de Q{-3-G també podria pertànyer a la via de senyalització NF-kB.
2.3.Vies de senyalització relacionades amb la hidratació de Q-3-G mitjançant l'activació d'AP-1 i NF-kB
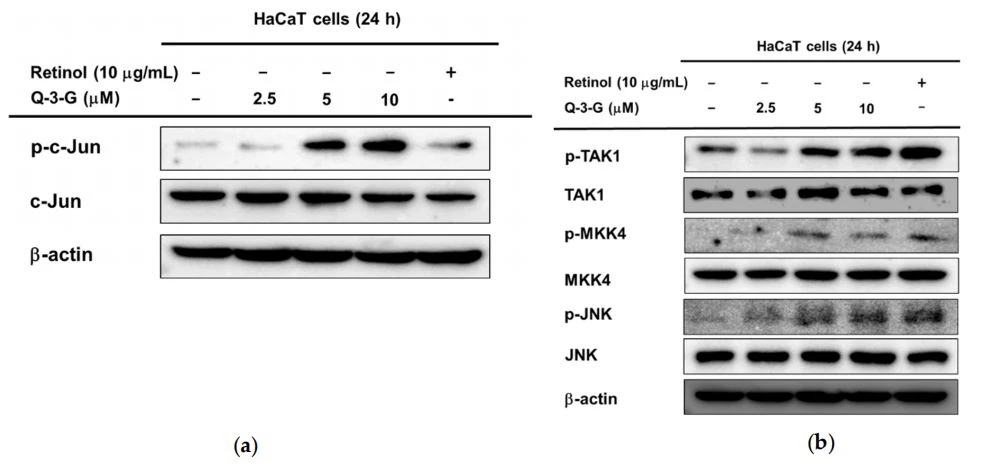
A partir dels resultats de l'ARNm anteriors, vam plantejar la hipòtesi que la implicació de la senyalització AP-1 i NF-kB en l'efecte d'hidratació de Q-3-G també es pot produir en els nivells de proteïnes. Mitjançant un assaig de Western blot, vam examinar la fosforilació de molècules aigües amunt d'AP-1 i NF-kB. En primer lloc, a la via AP-1, la fosforilació de c-Jun es va incrementar després de la incubació de cèl·lules HaCaT amb Q-3-G durant 24 h (figura 4a). El nivell de p-INK també es va augmentar després del tractament amb Q-3-G a concentracions de 2,5, 5 i 10 μM. La forma total de JNK es va mantenir sense canvis (figura 4b). Hem examinat més la fosforilació de MKK4 i TAK-1, que són reguladors aigües amunt de JNK. Com es mostra a la figura 3c, després del tractament de cèl·lules HaCaT amb O-3-G, els nivells de proteïnes de p-MKK4 i p-TAK1 també es van regular.
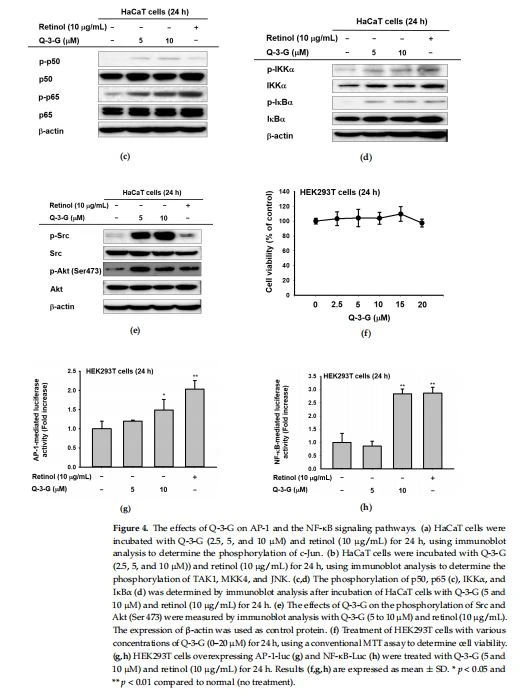
A més de la senyalització NF-kB, Q-3-G va augmentar la fosforilació de p50 i p65, una subunitat de NF-kB (figura 4c). A més, vam avaluar l'activació d'IKK i IkBa, que també es van incrementar en Q-3-G fins a 10 uM en comparació amb el grup control (figura 4d). Finalment, vam determinar l'activació de molècules aigües amunt implicades en la via de senyalització NF-kB. La fosforilació de Src i Akt (Ser473) es va millorar amb el tractament O-3-G (figura 4e). En general, aquestes dades indiquen que els efectes de protecció de la pell de Q-3-G tenen com a objectiu l'activació de TAK1 i Src augmentant el nivell de proteïnes, de manera que regula l'activitat d'AP{-1 i NF-kB, respectivament.
2.4.Efectes de Q-3-G sobre l'activació transcripcional d'AP-1 i NF-kB
Es va investigar la citotoxicitat cel·lular de Q-3-G a les cèl·lules de la línia de cèl·lules HEK293T de ronyó embrionari humà mitjançant un assaig MTT (figura 4f). La viabilitat de les cèl·lules HEK293T no es va veure afectada significativament després del tractament amb Q-3-G(2.5-20 μM) en comparació amb les cèl·lules no tractades.
Hem utilitzat un assaig de luciferasa per determinar si Q-3-G podria modular els assajos del promotor NF-kB i AP-1. Vam confirmar que O-3-G va augmentar l'activitat de la luciferasa mediada per AP-1- (figura 4g) i l'activitat de la luciferasa mediada per NF-kB (figura 4h) de manera dependent de la concentració. Aquests resultats validen que l'activació AP-1 i l'activació de NF-KB són objectius farmacològics importants de Q{-3-G.
Feu clic a l'enllaç per obtenir més informació:https://www.xjcistanche.com/news/part-2-anti-inflammatory-antioxidant-moistu-55118278.html